TCiencia
Usuario (Argentina)

¿Qué es la glucosa?La glucosa es un monosacárido con fórmula molecular C6H12O6, la misma que la fructosa pero con diferente posición relativa de los grupos -OH y O=. Es una hexosa, es decir, que contiene 6 átomos de carbono, y es una aldosa, esto es, el grupo carbonilo está en el extremo de la molécula. Es una forma de azúcar que se encuentra libre en las frutas y en la miel. Su rendimiento energético es de 3,75 kilocalorías por cada gramo en condiciones estándar.La aldohexosa glucosa posee dos enantiómeros, si bien la D-glucosa es predominante en la naturaleza. En terminología de la industria alimentaria suele denominarse dextrosa (término procedente de glucosa dextrorrotatoria) a este compuesto.Etimología.El término glucosa procede del griego γλεῦκος (gleûkos; mosto, vino dulce), y el sufijo «-osa» indica que se trata de un azúcar. La palabra fue acuñada en francés como glucose (con anomalía fonética) por Dumas en 1838; debería ser fonéticamente "gleucosa" (o "glicosa" si partimos de glykos, otro lexema de la misma raíz.Características.Todas las frutas naturales tienen cierta cantidad de glucosa (a menudo con fructosa), que puede ser extraída y concentrada para hacer un azúcar alternativo. Pero a nivel industrial, tanto la glucosa líquida (jarabe de glucosa) como la dextrosa (glucosa en polvo) se obtienen a partir de la hidrólisis enzimática de almidón de cereales (generalmente trigo o maíz).La glucosa, libre o combinada, es el compuesto orgánico más abundante de la naturaleza. Es la fuente primaria de síntesis de energía de las células, mediante sus oxidación catabólica, y es el componente principal de polímeros de importancia estructural como la celulosa y de polímeros de almacenamiento energético como el almidón y el glucógeno.En su forma D-Glucosa, sufre una ciclación hacia su forma hemiacetálica para dar sus formas furano y pirano (D-glucofuranosa y D-glucopiranosa) que a su vez presentan anómeros alfa y beta. Estos anómeros no presentan diferencias de composición estructural, pero si diferentes características físicas y químicas.La D-(+)-glucosa, que es la forma mas abundante de forma natural, es uno de los compuestos más importantes para los seres vivos, incluyendo a los seres humanos. Por ejemplo:En su forma ß-D-(+)-glucopiranosa, dos moléculas de glucosa se une a otra a través de un enlace ß gracias a los -OH de sus carbonos 1-4 para formar celobiosa cuya nomenclatura sistemática sería 4-O-(ß-D-(+)-glucopiranosil)-ß-D-(+)-glucopiranosa, y al unirse varias de estas moléculas forman celulosa.Biosíntesis.Los organismos fotoautótrofos, como las plantas, sintetizan la glucosa en la fotosíntesis a partir de compuestos inorgánicos como agua y dióxido de carbono, según la reacción:Los seres heterótrofos, como los animales, son incapaces de realizar este proceso y toman la glucosa de otros seres vivos o la sintetizan a partir de otros compuestos orgánicos. La glucosa puede sintetizarse a partir de otros azúcares, como fructosa o galactosa. Otra posibilidad es la síntesis de glucosa a partir de moléculas no glucídicas, proceso conocido como gluconeogénesis. Hay diversas moléculas precursoras, como el lactato, el oxalacetato y el glicerol.También existen ciertas bacterias anaerobias que utilizan la glucosa para generar dióxido de carbono y metano según esta reacción:Gastronomía.En repostería se utiliza un derivado de la sacarosa, producido mediante hidrólisis ácida o enzimática, que se llama azúcar invertido, compuesto a partes iguales de fructosa y glucosa. Añadidos a la mezcla o formados durante el proceso, se usan en la elaboración de bollería, caramelos y otros productos de confitería. La mezcla es menos cristalizable que la sacarosa, evita la desecación de los productos congelados y hace descender el punto de congelación de helados.Moléculas de D- y L- glucosa. Fuente. Información que tal vez te pueda interesar.

¿Qué es el Vibrio Cholerae?Ésta, es una bacteria Gram negativa con forma de bastón (un bacilo) curvo que provoca el cólera en humanos. Junto con otra especie de género Vibrio pertenece a la subdivisión gamma de las Proteobacterias. Hay dos cepas principales de V. Cholerae, clásica y El Tor, y numerosos serogrupos.Características.Vibrio es un género de bacterias Gram negativas con forma de bacilos curvados. Bioquímicamente se caracterizan por dar positivo en las pruebas de la catalasa y de la oxidasa. Es una bacteria anaerobia facultativa, y su metabolismo es fermentativo; pueden fermentar, entre otros sustratos, la glucosa. Poseen flagelación polar, que les otorga una movilidad máxima.Pese a que nutricionalmente son poco exigentes, se emplean medios específicos para aislarlos de muestras clínicas.Aislamiento.A partir de vómitos o heces diarreicas, se extrae un alícuota que es introducido en un medio de transporte. De éste, se puede efectuar la observación en fresco, al microscopio de contraste de fase, o mediante una tinción de Gram. Existen kits de anticuerpos para efectuar su determinación e identificación por inmunofluorescencia.Una vez dirigida la sospecha al grupo, se siembra un alícuota en un medio de enriquecimiento que sea selectivo, como el TCBS (que contiene tiosulfato, citrato, sales biliares y sacarosa).Una vez obtenido en cultivo puro, se procesa la muestra mediante diversos tests bioquímicos: oxidasa, LDC, ODC, entre otros.Existen procedimientos de aglutinación para determinar el biotipo; por ejemplo, el O1 (llamado El Tor) y el O139 son los más relevantes clínicamente.Crecen con rapidez en agar peptona, agar sangre con pH cercano a 9,0; o sobre agar TCBS, y en 18 horas se pueden observar colonias típicas. Pueden incubarse unas pocas gotas de heces, para enriquecimiento, durante 6 a 8h en caldo taurocolato-peptona (pH 8 a 9).Factores de virulencia.Como adhesinas poseen pili TCP, corregulados con la toxina.Antígeno somático O, un pirógeno del lipopolisacárido.Antígeno H, del flagelo; antígeno proteico que permite el establecimiento de la bacteria en la mucosa del intestino delgado.Hemolisinas, en el biotipo El Tor.Neuraminidasa.Exotoxina, la toxina colérica, principal factor de virulencia.Toxina colérica.Es del tipo AB. Sus genes están agrupados en el operón Ctx AB, corregulado con los pili TCP antes mencionados.CtxA codifica para la subunidad A, activa biológicamente.CtxB codifica para la subunidad B, de unión al gangliósido GM de las células epiteliales.Existe una regulación traduccional que favorece la mayor expresión de la subunidad B; consiste en la posesión por parte de su mRNA de una secuencia de unión a ribosomas de más fuerza que la de A.Un hexámero AB5 interacciona con el gangliósido facilitando la penetración de la subunidad A (en realidad del fragmento A1) de la toxina en el citoplasma del enterocito. Este hecho permite la activación de la adenilato ciclasa celular por ADP-ribosilación de la proteína G estimuladora que regula dicha actividad adenilil ciclasa. Esto provoca un incremento en los niveles intracelulares de AMPc, lo cual favorece la secreción a la luz intestinal de agua y electrolitos, lo que redunda en una diarrea por flujo de fluidos al lumen intestinal.Tratamiento.De mantenimiento: hidratación y administración de glucosa y electrolitos.Antibioterapia: tetraciclina, cloranfenicol, entre otros.Existen vacunas de efectividad subóptima a partir del lipopolisacárido, toxoide, extractos celulares, etc.Diagnóstico.Las muestras para el cultivo consisten en tomar algo de moco de la heces fecales y se cultivan en agar TCBS que produce colonias color amarillas que son fácilmente visibles contra el fondo verde-oscuro del agar. Si la prueba de la oxidasa para detectar la bacteria Vibrio cholerae es positiva, el mismo ha detectado un organismo gram negativo.Vibrio Cholerae. Fuente. Información que tal vez te pueda interesar.

¿Qué es una célula?Una célula (del latín cellula, diminutivo de cellam, celda, cuarto pequeño) es la unidad morfológica y funcional de todo ser vivo. De hecho, la célula es el elemento de menor tamaño que puede considerarse vivo. De este modo, puede clasificarse a los organismos vivos según el número de células que posean: si sólo tienen una, se les denomina unicelulares (como pueden ser los protozoos o las bacterias, organismos microscópicos); si poseen más, se les llama pluricelulares. En estos últimos el número de células es variable: de unos pocos cientos, como en algunos nematodos, a cientos de billones (1014), como en el caso del ser humano. Las células suelen poseer un tamaño de 10 µm y una masa de 1 ng, si bien existen células mucho mayores.La teoría celular, propuesta en 1839 por Matthias Jakob Schleiden y Theodor Schwann, postula que todos los organismos están compuestos por células, y que todas las células derivan de otras precedentes. De este modo, todas las funciones vitales emanan de la maquinaria celular y de la interacción entre células adyacentes; además, la tenencia de la información genética, base de la herencia, en su ADN permite la transmisión de aquélla de generación en generación.La aparición del primer organismo vivo sobre la Tierra suele asociarse al nacimiento de la primera célula. Si bien existen muchas hipótesis que especulan cómo ocurrió, usualmente se describe que el proceso se inició gracias a la transformación de moléculas inorgánicas en orgánicas bajo unas condiciones ambientales adecuadas; tras esto, dichas biomoléculas se asociaron dando lugar a entes complejos capaces de autorreplicarse. Existen posibles evidencias fósiles de estructuras celulares en rocas datadas en torno a 4 o 3,5 miles de millones de años (giga-años o Ga.). Las evidencias de la presencia de vida basadas en desviaciones de proporciones isotópicas son anteriores (cinturón supracortical de Isua, 3,85 Ga.).Existen dos grandes tipos celulares: las procariotas (que comprenden las células de arqueas y bacterias) y las eucariotas (divididas tradicionalmente en animales y vegetales, si bien se incluyen además hongos y protistas, que también tienen células con propiedades características).Teoría celular.La historia de la biología celular ha estado ligada al desarrollo tecnológico que pudiera sustentar su estudio. De este modo, el primer acercamiento a su morfología se inicia con la popularización del microscopios rudimentarios de lentes compuestas en el siglo XVII, se suplementa con diversas técnicas histológicas para microscopía óptica en los siglos XIX y XX y alcanza un mayor nivel resolutivo mediante los estudios de microscopía electrónica, de fluorescencia y confocal, entre otros, ya en el siglo XX. El desarrollo de herramientas moleculares, basadas en el manejo de ácidos nucleicos y enzimas permitieron un análisis más exhaustivo a lo largo del siglo XX.Algunas características.Las células, como sistemas termodinámicos complejos, poseen una serie de elementos estructurales y funcionales comunes que posibilitan su supervivencia; no obstante, los distintos tipos celulares presentan modificaciones de estas características comunes que permiten su especialización funcional y, por ello, la ganancia de complejidad. De este modo, las células permanecen altamente organizadas a costa de incrementar la entropía del entorno, uno de los requisitos de la vida.Las células procariotas.Se llama procariotas (del griego πρό, pro = antes de y κάρυον, karion = núcleo) a las células sin núcleo celular diferenciado, es decir, cuyo material genético se encuentra disperso en el citoplasma, reunido en una zona denominada Nucleoide.Casi sin excepción los organismos basados en células procariotas son unicelulares, formados por una sola célula. Además, el término procariota hace referencia a los organismos del reino Prokaryota, cuyo concepto coincide con el reino Monera de las clasificaciones de Copeland o Whittaker que, aunque obsoletas, son aún muy populares.Diversidad bioquímica.El metabolismo de los procariotas es enormemente variado, a diferencia de los eucariotas, y muchos resisten condiciones ambientales sorprendentes por lo extremas en parámetros como la temperatura o la acidez.Cuando se considera la diversidad de los metabolismos, se observa que en toda su extensión es propia de los procariontes, y que la diversidad metabólica de los eucariontes es sólo un subconjunto de la anterior. Si en eucariontes encontramos diferencias metabólicas importantes, como la que distingue a los fotoautótrofos de los heterótrofos, o la que hay entre anaerobios y aerobios, es solamente porque portan distintos orgánulos de origen endosimbiótico, como plastos, mitocondrias o hidrogenosomas, procedentes de distintas procariotas.Evolución.No está aceptado que las células procariotas del dominio Archaea fueran las primeras células vivas, aunque se conocen fósiles de hace 3.500 millones de años. Después de su aparición, han sufrido una gran diversificación. Su metabolismo es lo más divergente, y causa que algunas procariotas sean muy diferentes a otras.Se cree que todos los organismos que existen actualmente derivan de una forma unicelular procariótica (LUCA). A lo largo de un lento proceso evolutivo, hace unos 1.500 millones de años, las procariotas derivaron en células más complejas, las eucariotas, probablemente por la combinación en una sola célula de dos o más procarióticas.Nutrición.La nutrición puede ser autótrofa (quimiosíntesis o fotosíntesis) o heterótrofa (saprófita, parásita o simbiótica). En cuanto al metabolismo los organismos pueden ser: anaerobios estrictos o facultativos, o aerobio.La quimiosíntesis es la conversión biológica de moléculas de un carbono y nutrientes en materia orgánica usando la oxidación de moléculas inorgánicas como fuente de energía, sin la luz solar, a diferencia de la fotosíntesis. Una gran parte de los organismos vivientes basa su existencia en la producción quimiosintética en fallas termales, cepas frías u otros hábitats extremos a los cuales la luz solar es incapaz de llegar.La fotosíntesis es la base de la vida actual en la Tierra. Consiste en una serie de procesos mediante los cuales las plantas, algas y algunas bacterias captan y utilizan la energía de la luz para transformar la materia inorgánica de su medio externo en materia orgánica que utilizan para su crecimiento y desarrollo.Los organismos capaces de llevar a cabo este proceso se denominan fotótrofos y si además son capaces de fijar el CO2 atmosférico (lo que ocurre casi siempre) se llaman autótrofos. Salvo en algunas bacterias, en el proceso de fotosíntesis se producen liberación de oxígeno molecular (proveniente de moléculas de agua) hacia la atmósfera (fotosíntesis oxigénica).Es ampliamente admitido que el contenido actual de oxígeno en la atmósfera se ha generado a partir de la aparición y actividad de dichos organismos fotosintéticos. Esto ha permitido la aparición evolutiva y el desarrollo de organismos aerobios capaces de mantener una alta tasa metabólica (el metabolismo aerobio es muy eficaz desde el punto de vista energético).La otra modalidad de fotosíntesis, la fotosíntesis anoxigénica, en la cual no se libera oxígeno, es llevada a cabo por un número reducido de bacterias, como las bacterias púrpuras del azufre y las bacterias verdes del azufre; estas bacterias usan como donador de hidrógenos el H2S, con lo que liberan azufre.Nutrición saprofita: Es a base de restos de animales o vegetales en descomposición.Nutrición parásita: Obtienen el alimento de un hospedador al que perjudican pero no llegan a matar.Nutrición simbiótica: Los seres que realizan la simbiosis obtienen la materia orgánica de otro ser vivo, el cual también sale beneficiado.Reproducción.Se da de dos maneras: reproducción asexual y/o Conjugacion.Reproducción asexual por bipartición o fisión binaria o mitosis: es la forma más sencilla y rápida en organismos unicelulares, cada célula se parte en dos, previa división del material genético y posterior división de citoplasma (citocinesis).Conjugación: Mecanismo parasexual de intercambio genético de gran número de organismos unicelulares que consiste en la fusión temporal de los gametos, de forma que se pueda transferir material genético del individuo donante (considerado como masculino) al receptor (considerado como femenino) que lo incorpora a su dotación genética mediante recombinación y lo transmite a su vez al reproducirse.Reproduccion Parasexual: Para obtener variavilidad y adaptarse a diferentes ambientes, entre las bacterias puedes ocurrir intercambio de ADN como la conjugacion, la transducion y la trasnformacionTransduccion: En este proceso , un agente transmisor , que generalmente es un virus , lleva fragmentos de ADN de una bacteria parasitada a otra nueva receptora, de tal forma que el ADN de la Bacteria parasitada se integra al ADN de la nueva bacteriaTransformacion: Una bacteria puede introducir en su interior fragmentos de ADN que estan libres en el medio; estos pueden provenir del rompimiento o degradacion de otras bacterias a su alrededor.Las células eucariotas.Se denomina eucariotas a todas las células que tienen su material hereditario fundamental (su información genética) encerrado dentro de una doble membrana, la envoltura nuclear, que delimita un núcleo celular. Igualmente estas células vienen a ser microscópicas pero de tamaño grande y variado comparado con las otras células.La alternativa a la organización eucariótica de la célula la ofrece la llamada célula procariota. En estas células el material hereditario se encuentra en una región específica denominada nucleoide,no aislada por membranas en el seno del citoplasma. Las células eucariotas no cuentan con un compartimiento alrededor de la membrana plasmática (periplasma), como el que tienen las células procariotas.A los organismos formados por células eucariotas se les denomina eucariontes.El paso de procariotas a eucariotas significó el gran salto en complejidad de la vida y uno de los más importantes de su evolución. Sin este paso, sin la complejidad que adquirieron las células eucariotas no habrían sido posibles ulteriores pasos como la aparición de los pluricelulares. La vida, probablemente, se habría limitado a constituirse en un conglomerado de bacterias. De hecho, los cuatro reinos restantes procedemos de ese salto cualitativo. El éxito de estas células eucariotas posibilitó las posteriores radiaciones adaptativas de la vida que han desembocado en la gran variedad de especies que existe en la actualidad.Organización.Las células eucariotas presentan un citoplasma compartimentado, con orgánulos (semimembranosos) separados o interconectados, limitados por membranas biológicas que son de la misma naturaleza esencial que la membrana plasmática. El núcleo es solamente el más notable y característico de los compartimentos en que se divide el protoplasma, es decir, la parte activa de la célula. En el protoplasma distinguimos tres componentes principales, a saber, la membrana plasmática, el núcleo y el citoplasma, constituido por todo lo demás. Las células eucariotas están dotadas en su citoplasma de un citoesqueleto complejo, muy estructurado y dinámico, formado por microtúbulos y diversos filamentos proteicos. Además puede haber pared celular, que es lo típico de plantas, hongos y protistas pluricelulares, o algún otro tipo de recubrimiento externo al protoplasma.Fisiología.Las células eucariotas contienen en principio mitocondrias, orgánelos que habrían adquirido por endosimbiosis de ciertas bacterias primitivas, lo que les dota de la capacidad de desarrollar un metabolismo aerobio. Sin embargo, en algunas eucariotas del reino protistas las mitocondrias han desaparecido secundariamente en el curso de la evolución, en general derivando a otros orgánulos, como los hidrogenosomas.Algunos eucariontes realizan la fotosíntesis, gracias a la presencia en su citoplasma de orgánulos llamados plastos, los cuales derivan por endosimbiosis de bacterias del grupo denominado cianobacterias (algas azules).Aunque demuestran una diversidad increíble en su forma, comparten las características fundamentales de su organización celular, arriba resumidas, y una gran homogeneidad en lo relativo a su bioquímica (composición), y metabolismo, que contrasta con la inmensa heterogeneidad que en este terreno presentan los procariontes (bacteria en sentido amplio).Célula eucariota animal.Las células animales componen los tejidos de los animales y se distinguen de las células vegetales en que carecen de paredes celulares y de cloroplastos y poseen centríolos y vacuolas más pequeñas y, generalmente, más abundantes. Debido a la carencia de pared celular rígida, las células animales pueden adoptar variedad de formas e incluso pueden fagocitar otras estructuras.Célula eucariota vegetal.Las características distintivas de las células de las plantas son:Una vacuola central grande (delimitada por una membrana, el tonoplasto), que mantiene la forma de la célula y controla el movimiento de moléculas entre citosol y savia.Una pared celular compuesta de celulosa y proteínas, y en muchos casos, lignina, que es depositada por el protoplasto en el exterior de la membrana celular. Esto contrasta con las paredes celulares de los hongos, que están hechas de quitina, y la de los procariontes, que están hechas de peptidoglicano.Los plasmodesmos, poros de enlace en la pared celular que permiten que las células de las plantas se comuniquen con las células adyacentes. Esto es diferente a la red de hifas usada por los hongos.Los plastos, especialmente cloroplastos que contienen clorofila, el pigmento que da a la plantas su color verde y que permite que realicen la fotosíntesis.Los grupos de plantas sin flagelos (incluidas coníferas y plantas con flor) también carecen de los centriolos que están presentes en las células animales. Estos también se pueden encontrar en los animales de todos los tipos es decir en un mamifero en una ave o en un reptil.Células de hongos.Las células de los hongos, en su mayor parte, son similares a las células animales, con las excepciones siguientes:Una pared celular hecha de quitina.Menor definición entre células. Las células de los hongos superiores tienen separaciones porosas llamados septos que permiten el paso de citoplasma, orgánulos, y a veces, núcleos. Los hongos primitivos no tienen tales divisiones, y cada organismo es esencialmente una supercélula gigante. Estos hongos se conocen como coenocíticos.Solamente los hongos más primitivos, Chytridiomycota, tienen flagelos.Representación célula eucariota vegetal.Representación célula eucariota animal. Fuente. Fuente 2. Información que tal vez te pueda interesar.
Hipótesis sobre el origen de la vida.En los albores de la humanidad, las explicaciones que el hombre realizaba con respecto al cómo y al por qué de todos los fenómenos naturales tenían una connotación mágico-religiosa.Con la llegada de los filósofos griegos, estas explicaciones trataban de alejarse de dicha connotación.Las teorías sobre el origen de la humanidad fueron cuatro.Teorías sobre el origen de la vida.Fijismo creacionista: Se basaba en que las formas de vida no evolucionaban, y decía que Dios era el creador del universo y de todo lo que contenía.Generación espontánea: Se pensaba que la vida surgía espontáneamente de las estructuras inertes; como es el caso de los gusanos de la carne en descomposición.Paspermias: Trataba de que la generación de la vida era a través de una especie de esporas con una capa protectora resistente que provenían del espacio.Quimiosíntesis: Habla del origen de la vida como una evolución química. Es la más aceptada en la actualidad.Los coacervados o protocélulas.Los coacervados fueron un conjunto de moléculas orgánicas simples, que al ponerse en contacto con el agua de mar de la atmósfera primitiva adquirían una membrana protectora.Así, se delimitó un medio interno del externo. Por ende, en este medio interno, comenzaron a suceder procesos físicos y químicos, que de a poco fueron evolucionando hasta pasar a ser las primeras células.Características de las primeras células.Como hemos de suponer, las primeras formas de vida después de las protocélulas fueron bacterias procariotas muy simples, es decir, unicelulares.En esos tiempos no había oxígeno, solo se hallaba el metano, el nitrógeno, el dióxido de carbono, y el sulfím de hidrógeno. Por ende, como se ausentaba el oxígeno, estas bacterias fueron anaeróbicas. Y por decir que no había oxígeno, entonces, no había fotosintetizadores, y por deducción, también se puede decir que estas formas de vida primitivas fueron heterótrofas.Hemos de corresponder las altas temperaturas del momento, y en definición también sabemos que dichas bacterias fueron extremófilas.Para que lo recuerden, las primeras formas de vida fueron bacterias procariotas, unicelulares, heterótrofas, anaeróbicas y extremófilas.Niveles de organización de los seres vivos.Bueno, ya sabemos como se originó la vida. Y también sabemos que estas bacterias en cierto momento, comenzaron a evolucionar.Así, y ahora a su tiempo, podemos organizar a estos seres por su nivel de complejidad.Nivel sub-atómico: A este nivel pertenece todo aquello que conforma al átomo, es decir, los protones, los electrones, los neutrones, los quarks, los leptones, los hadrones, etc.Nivel atómico: Este es el nivel de los átomos.Nivel molecular: Los átomos se enlazan constituyendo moléculas, que pueden estar constituidas por átomos del mismo elemento, como es el caso de ozono.Nivel macro-molecular complejo: Este es el nivel de las moléculas muy grandes, que adquieren formas rebuscadas y complejas, que además se forman por el enlace de moléculas más pequeñas.Nivel protoplasmático: Aquí ubicamos a los individuos formados por una sola célula.Nivel celular: Nivel de los organismos pluricelulares, cuyas células suelen cumplir la misma función.Nivel tisular: Las células se unen y forman tejidos, los cuales pueden variar en tareas.Nivel orgánico: Casi el más complejo, aquí se encuentran los órganos, que pueden cumplir diversas funciones.Nivel sistema orgánico: Bueno, aquí ya estamos nosotros, cuando un ser se compone de varios órganos, llegan a este nivel. Por ejemplo: Tortuga, gato, perro, monos, humanos, etc.Vibrio Cholerae.Fuente: Conocimientos propios.Información que tal vez te interese:Los estados de la materia.
¿Qué establece la ley de Ohm?La Ley de Ohm establece que la intensidad que circula por un conductor, circuito o resistencia, es inversamente proporcional a la resistencia (R) y directamente proporcional a la tensión (E).La ecuación matemática que describe esta relación es:.Donde, I es la corriente que pasa a través del objeto en amperios, V es la diferencia de potencial de las terminales del objeto en voltios, y R es la resistencia en ohmios (Ω). Específicamente, la ley de Ohm dice que la R en esta relación es constante, independientemente de la corriente.1Esta ley tiene el nombre del físico alemán Georg Ohm, que en un tratado publicado en 1827, halló valores de tensión y corriente que pasaba a través de unos circuitos eléctricos simples que contenían una gran cantidad de cables. Él presentó una ecuación un poco más compleja que la mencionada anteriormente para explicar sus resultados experimentales. La ecuación de arriba es la forma moderna de la ley de Ohm.Historia.En enero de 1781, antes del trabajo de Georg Ohm, Henry Cavendish experimentó con botellas de Leyden y tubos de vidrio de diferente diámetro y longitud llenados con una solución salina. Como no contaba con los instrumentos adecuados, Cavendish calculaba la corriente de forma directa: se sometía a ella y calculaba su intensidad por el dolor. Cavendish escribió que la "velocidad" (corriente) variaba directamente por el "grado de electrificación" (tensión). Él no publicó sus resultados a otros científicos a tiempo, y sus resultados fueron desconocidas hasta que Maxwell los publicó en 1879.En 1825 y 1826, Ohm hizo su trabajo sobre las resistencias, y publicó sus resultados en 1827 en el libro Die galvanische Kette, mathematisch bearbeitet (Trabajos matemáticos sobre los circuitos eléctricos). Su inspiración la obtuvo del trabajo de la explicación teórica de Fourier sobre la conducción del calor.En sus experimentos, inicialmente uso pilas voltaicas, pero posteriormente usó un termopar ya que este proveía una fuente de tensión con una resistencia interna y diferencia de potencial casi constante. Usó un galvanómetro para medir la corriente, y se dio cuenta que la tensión de las terminales del termopar era proporcional a su temperatura. Entonces agregó cables de prueba de diferente largo, diámetro y material para completar el circuito. El encontró que los resultados obtenidos podían modelarse a través de la ecuación:.Donde x era la lectura obtenida del galvanómetro, l era el largo del conductor a prueba, a dependía solamente de la temperatura del termopar, y b era una constante de cada material. A partir de esto, Ohm determinó su ley de proporcionalidad y publicó sus resultados.La ley de Ohm todavía se sigue considerando como una de las descripciones cuantitativas más importante de la física de la electricidad, aunque cuando Ohm publicó por primera vez su trabajo las críticas lo rechazaron. Fue denominado "una red de fantasías desnudas", y el ministro alemán de educación afirmó que un profesor que predicaba tales herejías no era digno de enseñar ciencia. El rechazo al trabajo de Ohm se debía a la filosofía científica que prevalecía en Alemania en esa época, la cual era liderada por Hegel, que afirmaba que no era necesario que los experimentos se adecuaran a la comprensión de la naturaleza, porque la naturaleza esta tan bien ordenada, y que además la veracidad científica puede deducirse al razonar solamente. También, el hermano de Ohm, Martín Ohm, estaba luchando en contra del sistema de educación alemán. Todos estos factores dificultaron la aceptación del trabajo de Ohm, el cual no fue completamente aceptado hasta la década de los años 1840. Afortunadamente, Ohm recibió el reconocimiento de sus contribuciones a la ciencia antes de que muriera.En los años 1850, la ley de Ohm fue conocida como tal, y fue ampliamente probada, y leyes alternativas desacreditadas, para las aplicaciones reales para el diseño del sistema del telégrafo, discutido por Morse en 1855.En los años 1920, se descubrió que la corriente que fluye a través de un resistor ideal tiene fluctuaciones estadísticas, que dependen de la temperatura, incluso cuando la tensión y la resistencia son exactamente constantes. Esta fluctuación, conocida como ruido de Johnson-Nyquist, es debida a la naturaleza discreta de la carga. Este efecto térmico implica que las medidas de la corriente y la tensión que son tomadas por pequeños períodos de tiempo tendrá una relacion V/I que fluirá del valor de R implicado por el tiempo promedio de la corriente medida. La ley de Ohm se mantiene correcta para la corriente promedio, para materiales resistivos.El trabajo de Ohm precedió a las ecuaciones de Maxwell y también a cualquier comprensión de los circuitos de corriente alterna. El desarrollo moderno en la teoría electromagnética y el análisis de circuitos no contradicen la ley de Ohm cuando estás son evaluadas dentro de los límites apropiados.Georg Ohm.Fuente.Información que tal vez te pueda interesar.Las partículas elementales.Más información acerca del plasma.
¿En qué se basan las leyes de Kirchhoff?Las leyes de Kirchhoff son dos igualdades que se basan en la conservación de la energía y la carga en los circuitos eléctricos. Fueron descritas por primera vez en 1845 por Gustav Kirchhoff. Son ampliamente usadas en ingeniería eléctrica.Ambas leyes de circuitos pueden derivarse directamente de las ecuaciones de Maxwell, pero Kirchhoff precedió a Maxwell y gracias a Georg Ohm su trabajo fue generalizado. Estas leyes son muy utilizadas en ingeniería eléctrica para hallar corrientes y tensiones en cualquier punto de un circuito eléctrico.Ley de corrientes.Esta ley también es llamada ley de nodos o primera ley de Kirchhoff y es común que se use la sigla LCK para referirse a esta ley. La ley de corrientes de Kirchhoff nos dice que:En cualquier nodo, la suma de la corriente que entra en ese nodo es igual a la suma de la corriente que sale. De igual forma, La suma algebraica de todas las corrientes que pasan por el nodo es igual a cero.La ley se basa en el principio de la conservación de la carga donde la carga en couloumbs es el producto de la corriente en amperios y el tiempo en segundos.Ley de tensiones.Esta ley es llamada también Segunda ley de Kirchhoff, ley de lazos de Kirchhoff y es común que se use la sigla LVK para referirse a esta ley. En toda malla la suma de todas las caídas de tensión es igual a la tensión total suministrada. De forma equivalente, En toda malla la suma algebraica de las diferencias de potencial eléctrico es igual a cero.Ley de nodos.Fuente.Información que tal vez te interese.Ley de Ohm.
Un coacervado según Oparín.Coacervado es el nombre con el que Alexander Oparin denominó a un tipo de protobionte. Oparín demostró que se forman membranas lipídicas en ausencia de vida y obtuvo en el curso de los experimentos unas gotas ricas en moléculas biológicas y separadas del medio acuoso por una membrana rudimentaria. A estas gotas las llamó coacervados.Características.Los coacervados o protocélulas pueden también definirse como un conjunto de moléculas coloidales en las que las moléculas de agua están rígidamente orientadas respecto a ellas y rodeadas por una película de agua, que delimitan nítidamente los coacervados del líquido en el cual flotan por el aire.El coacervado es un glóbulo formado de una membrana que tiene en su interior sustancias químicas; a medida que aumenta su complejidad, el coacervado se separa del agua formando una unidad independiente, que sin embargo interactúa con su entorno.Teorías.El coacervado llega incluso a tener tendencia selectiva en los elementos que va a incorporar, así formando estructuras, más complejas pero muy ordenadas.Es posible que en un ambiente inhóspito como la atmósfera primitiva, llena de metano, amoníaco, agua y dióxido de carbono, los coacervados se formaran a través de las condiciones de la misma. Los rayos ultravioleta atravesaban la tierra debido a la falta de una capa de ozono, y las grandes descargas eléctricas pudieron ser factores que permitieron su formación.También se piensa que estos conjuntos de moléculas pudieron estar en los grandes lechos marinos donde había una gran cantidad de materia orgánica, allí ellos la absorbieron y crearon moléculas mucho más avanzadas, antecesoras de las actuales células.Podría ser que este proceso se repitiera hasta llegar a modelos parecidos a los organismos unicelulares actuales.Imágenes de coacervados.Fuente.Información que tal vez te pueda interesar.Las primeras formas de vida.
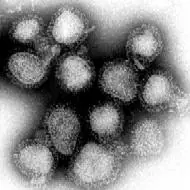
¿Qué es un virus?En biología, un virus (del latín virus, «toxina» o «veneno») es una entidad infecciosa microscópica que sólo puede multiplicarse dentro de las células de otros organismos. Los virus infectan todos los tipos de organismos, desde animales y plantas hasta bacterias y arqueas. Los virus son demasiado pequeños para poder ser observados con la ayuda de un microscopio óptico, por lo que se dice que son submicroscópicos. El primer virus conocido, el virus del mosaico del tabaco, fue descubierto por Martinus Beijerinck en 1899, y actualmente se han descrito más de 5.000, si bien algunos autores opinan que podrían existir millones de tipos diferentes. Los virus se hallan en casi todos los ecosistemas de la Tierra y son el tipo de entidad biológica más abundante. El estudio de los virus recibe el nombre de virología,6 una rama de la microbiología.Composición.A diferencia de los priones y viroides, los virus se componen de dos o tres partes: su material genético, que porta la información hereditaria, que puede ser ADN o de ARN; una cubierta proteica que protege a estos genes (llamada cápside) y en algunos también se puede encontrar una bicapa lipídica que los rodea cuando se encuentran fuera de la célula (denominada envoltura vírica). Los virus varían en su forma, desde simples helicoides o icosaedros hasta estructuras más complejas. El origen evolutivo de los virus aún es incierto, algunos podrían haber evolucionado a partir de plásmidos (fragmentos de ADN que se mueven entre las células), mientras que otros podrían haberse originado desde bacterias. Además, desde el punto de vista de la evolución de otras especies, los virus son un medio importante de transferencia horizontal de genes, la cual incrementa la diversidad genética.¿Todos los virus producen enfermedades?No todos los virus provocan enfermedades, ya que muchos virus se reproducen sin causar ningún daño al organismo infectado. Algunos virus como el VIH pueden producir infecciones permanentes o crónicas cuando el virus continúa replicándose en el cuerpo evadiendo los mecanismos de defensa del huésped. En los animales, sin embargo, es frecuente que las infecciones víricas produzcan una respuesta inmunitaria que confiere una inmunidad permanente a la infección. Los microorganismos como las bacterias también tienen defensas contra las infecciones víricas, conocidas como sistemas de restricción-modificación. Los antibióticos no tienen efecto sobre los virus, pero se han desarrollado medicamentos antivirales para tratar infecciones potencialmente mortales.Etimología.La palabra proviene del latín virus, que hace referencia al veneno o alguna sustancia nociva, y fue usada por primera vez en inglés en 1392. Virulento, del latín virulentus (venenoso), data del 1400. La mención de «agente que causa enfermedades infecciosa» se usó por primera vez en 1728,15 antes del descubrimiento de los virus por Dmitri Ivanovski en 1892. El adjetivo "viral" data de 1948. El término «virión» también se utiliza para referirse a una única partícula vírica infecciosa. El plural es «virus».Origen.Los virus son organismos parásitos que infectan células y producen viriones para difundir sus genes. La mayoría de las proteínas virales no tienen homólogos en las células modernas, en contradicción con la visión tradicional de los virus como los «ladrones de genes celulares». Esto sugiere que los genes virales básicamente tienen su origen durante la replicación de los genomas virales y/o fueron reclutados de linajes celulares ahora extintos. Algunas proteínas virales específicas están presentes en virus que infectan a los miembros de los tres dominios de la vida,39 lo que sugiere que los virus son en realidad muy antiguos. En particular, los análisis estructurales de proteínas de la cápside han revelado que al menos dos tipos de viriones se originaron de manera independiente antes que LUCA (el último antepasado universal celular). Aunque varias hipótesis han sido recientemente propuestas para explicar el origen de los virus, la aparición de viriones, como un mecanismo específico para la difusión de genes, permanece sin explicación.Teoría de la regresión.Es posible que los virus fueran pequeñas células que parasitaban células más grandes. A lo largo del tiempo, los genes que no necesitaban por su parasitismo desaparecieron. Las bacterias Rickettsia y Chlamydia son células vivientes que, como los virus, sólo pueden reproducirse dentro de células huéspedes. El ejemplo de estas bacterias parece apoyar esta teoría, pues es probable que su dependencia del parasitismo haya causado la pérdida de los genes que les permitían sobrevivir fuera de una célula. También se le llama «teoría de la degeneración».Teoría del origen celular.(También llamada «hipótesis del nomadeo» o «hipótesis del vagabundeo»): algunos virus podrían haber evolucionado a partir de fragmentos de ADN o ARN que «escaparon» de los genes de un organismo mayor. El ADN fugitivo podría haber provenido de plásmidos (fragmentos de ADN que pueden moverse entre células) o transposones. Estos son moléculas de ADN que se replican y se mueven a diferentes posiciones en el interior de los genes de la célula. Antiguamente llamados «genes saltarines», son ejemplos de elementos móviles genéticos y podrían ser el origen de algunos virus. Los transposones fueron descubiertos en 1950 por Barbara McClintock a partir de sus estudios en maíz.Teoría de la coevolución.Los virus podrían haber evolucionado de complejas moléculas de proteínas y ácido nucleico, al mismo tiempo que aparecieron las primeras células en la Tierra, y habrían sido dependientes de la vida celular durante muchos millones de años. Los viroides son moléculas de ARN que no son clasificadas como virus porque carecen de envoltura proteica. Sin embargo, tienen características comunes a diversos virus y a menudo se les llama agentes subvíricos. Los viroides son importantes patógenos de las plantas. No codifican proteínas, pero interactúan con la célula huésped y la utilizan para replicarse y producir sus proteínas. El virus de la hepatitis D de los humanos tiene un genoma de ARN similar al de los viroides pero tiene un envoltorio proteico derivado del virus de la hepatitis B y no puede producir uno propio. Por lo tanto, es un virus defectuoso que no puede replicarse sin la ayuda del virus de la hepatitis B. De la misma forma, el virófago 'sputnik' es dependiente del mimivirus, el cual infecta a Acanthamoeba castellanii. Estos virus que dependen de otras especies víricas reciben el nombre de satélites, y podrían representar estadios evolutivos intermedios entre los viroides y los virus.Estructura.Existen opiniones dispares sobre si los virus son una forma de vida o estructuras orgánicas que interactúan con los seres vivos. Por ello algunos autores se refieren a ellos como «organismos al límite de la vida». Por una parte se asemejan a los organismos que tienen genes y evolucionan por selección natural, y se reproducen creando múltiples copias de sí mismos para autoensamblarse. Sin embargo, carecen de estructura celular, lo cual es considerado la unidad básica de la vida. Además, los virus no tienen un metabolismo propio, y necesitan una célula hospedadora para crear nuevos productos. Por tanto, no se pueden reproducir en el exterior de una célula huésped (aunque bacterias como Rickettsia y Chlamydia son considerados organismos vivos a pesar de tener la misma limitación). Las formas de vida aceptadas utilizan la división celular para reproducirse, mientras que los virus aparecen de forma súbita y en gran cantidad dentro de las células, lo que es análogo al crecimiento autónomo de los cristales. El autoensamblaje de los virus dentro de las células tiene implicaciones para el estudio del origen de la vida, pues refuerza las hipótesis de que la vida podría haber comenzado en forma de moléculas orgánicas autoensamblantes.Ácido nucleico.El ácido nucleico en los virus contiene la información específica y el potencial para modificar operaciones en la célula infectada. Los ácidos nucleicos son macromoléculas constituidas por cadenas de nucleótidos, los cuales a su vez están constituidos por una base nitrogenada asociada a un azúcar del grupo de las pentosas y a uno o más grupos de fosfatos. Existen cuatro posibles tipos de ácido nucleico viral: ADN de cadena sencilla, ADN de cadena doble, ARN de cadena sencilla y ARN de cadena doble. Virus que contienen cualquiera de estos tipos de ácido nucleico pueden ser encontrados tanto entre los fagos como entre los virus que infectan a plantas o animales.El ADN de algunos bacteriófagos se caracteriza por contener bases raras que substituyen alguna o algunas de las bases normalmente presentes en el ADN. El ADN de cadena doble presente en algunos virus, se caracteriza por tener segmentos de cadena sencilla en ambos extremos de la molécula. Debido a que son complementarias las secuencias de nucleótidos presentes en ambos extremos. El ADN naturalmente circular puede ser de cadena sencilla como en el fago ØXI74, o de cadena doble, como en el virus SV4O. Existe evidencia de que algunos virus ARN que producen infecciones en vegetales como el limonero y la papa contienen moléculas circulares de ARN.En los últimos diez años se han desarrollado una variedad de técnicas y métodos que permiten determinar la secuencia de nucleótidos en cualquier tipo de ácido nucleico. La primera secuencia completa de un ARN viral fue determinada en el fago MS2 por el grupo de Walter Fiers en 1976. En 1977, Fred Sanger y colaboradores publicaron la secuencia completa del genoma del fago ØXl74, constituido por ADN de cadena sencilla. Posteriormente, muchos otros genomas virales de mayor tamaño y complejidad han sido secuenciados en parte o en su totalidad.Estructura del virus.Los virus presentan una amplia diversidad de formas y tamaños, llamadas «morfologías». Son unas 100 veces más pequeños que las bacterias. La mayoría de los virus estudiados tienen un diámetro de entre 10 y 300 nanómetros. Algunos Filovirus tienen un tamaño total de hasta 1.400 nm, sin embargo, sólo miden unos 80 nm de diámetro.69 La mayoría de virus no pueden ser observados con un microscopio óptico, de manera que se utilizan microscopios electrónicos de barrido y de transmisión para visualizar partículas víricas.70 Para aumentar el contraste entre los virus y el trasfondo se utilizan tinciones densas en electrones. Son soluciones de sales de metales pesados como wolframio, que dispersan electrones en las regiones cubiertas por la tinción. Cuando las partículas víricas están cubiertas por la tinción (tinción positiva), oscurecen los detalles finos. La tinción negativa evita este problema, tiñendo únicamente el trasfondo.71Una partícula vírica completa, conocida como virión, consiste en un ácido nucleico rodeado por una capa de protección proteica llamada cápside. Las cápsides están compuestas de subunidades proteicas idénticas llamadas capsómeros.72 Los virus tienen un «envoltorio lipídico» derivado de la membrana celular del huésped. La cápside está formada por proteínas codificadas por el genoma vírico, y su forma es la base de la distinción morfológica.73 74 Las subunidades proteicas codificadas por los virus se autoensamblan para formar una cápside, generalmente necesitando la presencia del genoma viral. Sin embargo, los virus complejos codifican proteínas que contribuyen a la construcción de su cápside. Las proteínas asociadas con los ácidos nucleicos son conocidas como nucleoproteínas, y la asociación de proteínas de la cápside vírica con ácidos nucleicos víricos recibe el nombre de nucleocápside.75 76 En general, hay cuatro tipos principales de morfología vírica:Helicoidal.las cápsides helicoidales se componen de un único tipo de capsómero apilado alrededor de un eje central para formar una estructura helicoidal que puede tener una cavidad central o un tubo hueco. Esta formación produce viriones en forma de barra o de hilo, pueden ser cortos y muy rígidos, o largos y muy flexibles. El material genético, normalmente ARN monocatenario, pero a veces ADN monocatenario, queda unido a la hélice proteica por interacciones entre el ácido nucleico con carga negativa y la carga positiva de las proteínas. En general, la longitud de una cápside helicoidal está en relación con la longitud del ácido nucleico que contiene, y el diámetro depende del tamaño y la distribución de los capsómeros. El conocido virus del mosaico del tabaco es un ejemplo de virus helicoidal.Icosaédrica.la mayoría de virus que infectan los animales son icosaédricos o casi-esféricos con simetría icosaédrica. Un icosaedro regular es la mejor manera de formar una carcasa cerrada a partir de subunidades idénticas. El número mínimo requerido de capsómeros idénticos es doce, cada uno compuesto de cinco subunidades idénticas. Muchos virus, como los rotavirus, tienen más de doce capsómeros y parecen esféricos, manteniendo esta simetría. Los ápices de los capsómeros están rodeados por otros cinco capsómeros y reciben el nombre de pentones. Las caras triangulares de éstos también se componen de otros seis capsómeros y reciben el nombre de hexones.Envoltura.algunas especies de virus se envuelven en una forma modificada de una de las membranas celulares, o bien es la membrana externa que rodea una célula huésped infectada, o bien membranas internas como la membrana nuclear o el retículo endoplasmático, consiguiendo así una bicapa lipídica exterior conocida como envoltorio vírico. Esta membrana se rellena de proteínas codificadas por el genoma vírico y el del huésped, la membrana lipídica en sí y todos los carbohidratos presentes son codificados completamente por el huésped. El virus de la gripe y el VIH utilizan esta estrategia. La mayoría de virus envueltos dependen de la envoltura para infectar.Complejos.los virus tienen una cápside que no es ni puramente helicoidal, ni puramente icosaédrica, y que puede poseer estructuras adicionales como colas proteicas o una pared exterior compleja. Algunos bacteriófagos (como el Fago T4) tienen una estructura compleja que consiste en un cuerpo icosaédrico unido a una cola helicoidal (esta cola actúa como una jeringa molecular, atacando e inyectando el genoma del virus a la célula huésped), que puede tener una base hexagonal con fibras caudales proteicas que sobresalgan.Genoma.Se puede ver una enorme variedad de estructuras genómicas entre las especies de virus que, como grupo, contienen una diversidad genómica superior a la de los reinos de plantas, los animales o las bacterias. Hay millones de diferentes tipos de virus; y únicamente alrededor de 5.000 de ellos han sido descritos detalladamente. Un virus tiene un genoma compuesto de ADN o bien de ARN, y reciben respectivamente los nombres de «virus ADN» y «virus ARN». La gran mayoría de virus utilizan el ARN. Los virus de las plantas tienden a tener ARN monocatenario y los bacteriófagos tienden a tener ADN bicatenario.Ciclos de virus.La adhesión o absorción es una unión específica entre proteínas de la cápside vírica y receptores específicos de la superficie celular del huésped, pero algunos bacteriófagos también son capaces de adherirse a los flagelos, vellosidades (pili) o cápsulas presentes en la superficie de la bacteria hospedera. Para que esto suceda la bacteria debe contener el factor sexual "F" o ciertas colicinas (factores de resistencia contra agentes antimicrobianos). Los bacteriófagos filamentosos con ADN de cadena sencilla se adhieren a las puntas de estos pili mientras que los bacteriófagos esféricos de ARN se adhieren a los costados de éstos. La especificidad de unión —proteína y cápside— se determina por la variedad de huéspedes de los virus. Por ejemplo, el VIH sólo infecta linfocitos T humanos, pues su proteína de superficie, gp120, puede interactuar con la CD4 y con receptores de la superficie del linfocito T. Este mecanismo ha evolucionado para favorecer los virus que sólo pueden infectar células en que se pueden replicar. La adhesión al receptor que puede inducir cambios en la proteína de la envoltura viral que resultan en la fusión de las membranas viral y celular.La penetración sigue a la adhesión; los virus se introducen en la célula huésped mediante endocitosis mediada por receptores o por fusión de membrana. Esto recibe a menudo el nombre de penetración vírica. La infección de las células vegetales es diferente a la de las células animales. Las plantas tienen una pared celular rígida hecha de celulosa y los virus sólo pueden entrar en las células cuando se produce un trauma en la pared celular. Los virus como el virus del mosaico del tabaco también pueden moverse directamente a las plantas, entre células, a través de poros llamados plasmodesmos. Las bacterias, como las de las plantas, tienen una fuerte pared celular que los virus tienen que romper para infectar la célula. Algunos virus han evolucionado mecanismos para inyectar su genoma a la célula bacteriana mientras la cápside viral permanece en el exterior.95El despojo es el proceso en que la cápside vírica es degradada por enzimas virales o del huésped, liberando así el ácido nucleico del genoma vírico.La replicación implica la síntesis de ARN mensajero (ARNm) vírico en todos los virus con rasgos de ARN positivos, la síntesis de proteínas víricas, el ensamblaje de proteínas víricas y la replicación del genoma viral. El proceso de replicación es esencial para mantener la estabilidad de la información genética contenida en el ADN. Esta replicación utiliza enzimas idénticas a las involucradas en la replicación del ADN celular y una característica común es la presencia de estructuras circulares temporales por lo menos en algunas de dicho proceso.Tras el ensamblaje de partículas víricas, a menudo se produce una modificación postraduccional de las proteínas víricas. En virus como el VIH, esta modificación (a veces llamada «maduración»), se produce después de que el virus haya sido liberado de la célula huésped.96 El ensamblaje puede producir nuevas partículas virales. Los virus pueden autoensamblarse en un proceso similar a la cristalización, ya que las partículas virales, al igual que los cristales, constituyen estructuras que se encuentran en un estado mínimo de energía libre. Sin embargo, el genoma viral también puede especificar ciertos factores "morfogenéticos" que no contribuyen directamente a formar la estructura del virión, pero son necesarios para el proceso de ensamblaje. El fenómeno de autoensamblaje ocurre en la formación de diversas estructuras biológicas.Los virus son liberados de la célula huésped por lisis—un proceso que mata la célula reventando su membrana. Los virus envueltos (como el VIH) son liberados de la célula huésped por gemación. Durante este proceso, el virus adquiere su envoltura, que es una parte modificada de la membrana plasmática del huésped.Tipos de virus.El material genético y el método por el cual los virus se replican, varían entre los diferentes tipos.Virus ADN.La replicación del genoma de la mayoría de virus ADN se produce en el núcleo de la célula. Si la célula tiene el receptor adecuado a la superficie, estos virus entran por fusión con la membrana celular o por endocitosis. La mayoría de virus ADN son completamente dependientes de la maquinaria de síntesis de ADN y ARN de la célula huésped, y su maquinaria de procesamiento de ARN. El genoma vírico debe atravesar la membrana nuclear de la célula para acceder a esta maquinaria.Virus ADN bicatenario.Este tipo de virus tiene su material genético compuesto por ADN de doble cadena y se replica usando una ADN polimerasa,98 que es dependiente del ADN y no del ARN. Este tipo de virus, por lo general, debe entrar en el núcleo de la célula huésped antes de que sea capaz de replicarse. Además, estos virus requieren de las polimerasas de la célula huésped para replicar el genoma viral y, por lo tanto, son altamente dependientes del ciclo celular.99 Para que pueda realizarse la infección y la producción de progenie del virus se requiere que la célula esté en la fase de replicación, que es cuando las polimerasas de la célula están activas. El virus puede forzar a la célula a realizar la división celular y de forma crónica esto puede conducir a la transformación de la célula y, en última instancia, producir cáncer.Virus ADN monocatenario.Este tipo de virus posee en su material genético ADN de cadena sencilla y se replica usando una ADN polimerasa dependiente del ADN —al igual que el Virus ADN bicatenario.102 A diferencias de los virus ADN bicatenarios, éstos poseen un ADN infectante monocatenario (de cadena simple), es decir, formado por una única cadena de nucleótidos, en lugar de la habitual doble hélice. Para que exista la replicación en este virus, es necesario que el ADN de cadena simple se convierta en ADN de cadena doble en las células infectadas.Virus ARN.Los virus ARN son únicos porque su información genética está codificada en ARN; esto quiere decir que usan el ácido ribonucleico (ARN) como material genético, o bien que en su proceso de replicación necesita el ARN. La replicación se suele producir en el citoplasma. Los virus ARN se pueden clasificar en unos cuatro grupos según su modo de replicación. La polaridad del ARN (si puede ser utilizado directamente o no para producir proteínas) determina en gran medida el mecanismo de replicación, y si el material genético es monocatenario o bicatenario. Los virus ARN utilizan sus propias ARN replicases para crear copias de su genoma.Virus ARN bicatenario.El virus ARN bicatenario es virus que posee ARN de cadena doble en su genoma. Como la mayoría de los virus ARN, se replican en el citoplasma y no dependen de las polimerasas de la células huésped como lo hacen los virus ADN, pues incluyen estas enzimas en el virión.102 La traducción suele ser monocistrónica, lo que significa que cada uno de los segmentos codifica una sola proteína, a diferencia de otros virus que exhiben una traducción más compleja. Una características partícular de éstos es su capacidad para llevar a cabo la transcripción de los segmentos de ARN bicatenarios bajo las condiciones apropiadas dentro de la cápside.Virus ARN monocatenario positivo.Los virus ARN monocatenarios positivos tienen ácido ribonucleico (ARN) de cadena sencilla de sentido positivo como material genético y no se replican usando ADN intermedio. Los virus ARN positivos son idénticos al ARNm viral y por lo tanto pueden ser inmediatamente traducidos por la célula huésped. Aunque el ARN purificado de un virus positivo puede causar directamente una infección, es menos infeccioso que el virus completo. La replicación tiene lugar principalmente en el citoplasma y no es tan dependiente del ciclo celular como en los virus ADN. Los virus ARN de sentido positivo tienen genomas con la misma polaridad del ARNm y pueden ser empleados directamente para la síntesis de proteínas usando la maquinaria de traducción de la célula huésped. Una de estas proteínas codificadas es la ARN replicasa, una ARN polimerasa que copia el ARN viral sin necesidad de pasar por una cadena de ADN intermedia.Virus ARN monocatenario negativo.Este virus tiene ácido ribonucleico (ARN) de cadena sencilla de sentido negativo como material genético y no se replica usando ADN intermedio.102 El ARN viral negativo es complementario del ARNm y por lo tanto debe convertirse en ARN positivo por una ARN polimerasa antes de la traducción. El ARN purificado de un virus negativo no es por sí mismo infeccioso puesto que necesita ser traducido en ARN positivo. Los virus ARN de sentido negativo utilizan una ARN polimerasa o transcriptasa para formar ARN de sentido positivo. Esto significa que el virus debe aportar la enzima ARN polimerasa puesto que ésta es dependiente del ARN. La molécula ARN de sentido positivo entonces actúa como un ARNm viral, que se traduce en proteínas por los ribosomas del huésped. Las proteína resultante se dedica directamente a la producción de los elementos de los nuevos viriones, tales como las proteínas de la cápsida y la ARN replicasa, que se encarga de la producción de nuevas moléculas de ARN de sentido negativo.Virus ARN monocatenario retrotranscrito.Un virus ARN monocatenario retrotranscrito (o virus ssRNA-RT) es un virus con ARN de cadena sencilla en su genoma que se replica en la célula huésped mediante transcripción inversa, es decir, mediante la formación de ADN a partir del molde ARN.102 Estos virus usan transcriptasa inversa codificada viralmente, es decir, una ADN polimerasa dependiente del ARN, para producir ADN a partir del genoma ARN viral. Este ADN a menudo se integra en el genoma del huésped, como en el caso de los retrovirus y seudovirus, donde es replicado y transcrito por el huésped.Virus ADN bicatenario retrotranscrito.Los virus de transcripción inversa se replican mediante la transcripción inversa, que es la formación de ADN a partir de una plantilla de ARN.102 Los virus de transcripción inversa que contienen un genoma de ARN utilizan un intermedio de ADN para replicarse, mientras que los que contienen un genoma de ADN utilizan un intermedio de ARN durante la replicación del genoma.Efectos en la célula huésped.La variedad de efectos estructurales y bioquímicos de los virus sobre las células huésped es grande. Reciben el nombre de «efectos citopáticos». La mayoría de infecciones víricas acaban provocando la muerte de la célula huésped, entre cuyas causas están la lisis de la célula, las alteraciones de la membrana superficial de la célula y la apoptosis. A menudo, la muerte de la célula es causada por el paro de sus actividades normales debido a la supresión por proteínas específicas del virus, que no son todas componentes de la partícula vírica.Algunos virus no causan cambios aparentes en la célula infectada. Las células en que los virus es latente e inactivo presentan pocos signos de infección y a menudo funcionan normalmente. Esto causa infecciones persistentes y el virus a menudo permanece durmiente durante muchos meses o años. Este suele ser el caso del herpes simple. Algunos virus, como el virus de Epstein-Barr, a menudo hacen proliferar las células sin causar malignidad, pero otros, como los papilomavirus, son una causa demostrada de cáncer.Clasificación.Las clasificaciones intentan describir la diversidad de virus dándoles nombre y agrupándolos según sus semejanzas. En 1962, André Lwoff, Robert Horne y Paul Tournier fueron los primeros en desarrollar una forma de clasificación de los virus, basada en el sistema jerárquico linneano. Este sistema basa la clasificación en filos, clases, órdenes, familias, géneros y especies. Los virus fueron agrupados según sus propiedades compartidas (no las de sus huéspedes) y el tipo de ácido nucleico del que se compone su genoma. Posteriormente se formó Comité Internacional de Taxonomía de Virus.Prevención.Dado que los virus utilizan la maquinaria de una célula huésped para reproducirse y residen en el interior, son difíciles de eliminar sin matar la célula huésped. Los enfoques médicos más eficientes para enfrentarse a las enfermedades víricas conocidos hasta ahora son las vacunas, que ofrecen resistencia a la infección, y los antivirales.Infección en otras especies.Los virus infectan todo tipo de vida celular y, aunque los virus existen en todo el mundo, cada especie celular tiene un grupo de virus específico, que a menudo sólo infectan esta especie. Los virus son importantes patógenos del ganado. Enfermedades como la fiebre aftosa y la lengua azul son causadas por virus. Los animales de compañía (como perros, gatos y caballos), si no se les vacuna, son susceptibles a infecciones víricas graves. El parvovirus canino es causado por un pequeño virus ADN y las infecciones a menudo son fatales en los cachorros. Como todos los invertebrados, la abeja de la miel es susceptible a muchas infecciones víricas. Afortunadamente, la mayoría de virus coexisten de manera inofensiva con su huésped y no causan signos o síntomas de enfermedad.Plantas.Hay muchos tipos de virus de las plantas, pero a menudo sólo causan una pérdida de producción, y no es económicamente viable intentar controlarlos. Los virus de las plantas a menudo son transmitidos de una planta a otra por organismos conocidos como vectores. Normalmente son insectos, pero también se ha demostrado que algunos hongos, nemátodos y organismos unicelulares son vectores. Cuando se considera económico el control de infecciones por fitovirus (en los frutos perennes, por ejemplo), los esfuerzos se concentran en matar a los vectores y eliminar huéspedes alternativos como malas hierbas. Los fitovirus son inofensivos para los humanos y demás animales, pues sólo se pueden reproducir en células vegetales vivas.Las plantas tienen mecanismos de defensa elaborados y eficientes contra los virus. Uno de los más eficientes es la presencia de los llamados genes de resistencia (R). Cada gen R confiere resistencia a un virus determinado desencadenando zonas localizadas de muerte celular alrededor de la célula infectada, que se pueden ver a simple vista en forma de manchas grandes. Esto detiene la expansión de la infección. La interferencia del ARN también es una defensa efectiva en las plantas. Cuando están infectadas, las plantas a menudo producen desinfectantes naturales que matan los virus, como el ácido salicílico, el óxido nítrico y moléculas reactivas de oxígeno.Bacterias.Los bacteriófagos son un grupo extremadamente común y diverso de virus. Por ejemplo, los bacteriófagos son la forma más común de entidad biológica en los medios acuáticos; en los océanos hay hasta diez veces más de estos virus que de bacterias, alcanzando niveles de 250 millones de bacteriófagos por milímetro cúbico de agua marina. Estos virus infectan bacterias específicas uniéndose a moléculas receptoras de superficie y entrando en la célula. En un periodo corto de tiempo (en algunos casos en unos minutos), las polimerasas bacterianas empiezan a traducir ARN vírico en proteína. Estas proteínas se convierten en nuevos viriones dentro de la célula, proteínas colaboradoras que ayudan a parecerse nuevos viriones, o proteínas implicadas en la lisis celular. Los enzimas víricos colaboran en la destrucción de la membrana celular y, en el caso del fago T4, un poco más de veinte minutos después de la inyección ya se pueden liberar más de 300 fagos.El mecanismo principal por el que las bacterias se defienden de los bacteriófagos es produciendo enzimas que destruyen el ADN ajeno. Estas enzimas, llamadas endonucleases de restricción, fragmentan el ADN vírico que los bacteriófagos introducen en las células bacterianas. Las bacterias también tienen un sistema que utiliza secuencias CRISPR para retener fragmentos del genoma de virus que se han encontrado en el pasado, lo que les permite impedir la replicación del virus mediante una forma de interferencia del ARN. Este sistema genético proporciona a las bacterias una inmunidad adquirida a las infecciones.Archea.Algunos virus se replican dentro de los arqueas, se trata de virus ADN que parecen no tener relación con ninguna otra forma de virus y que tienen una variedad de formas inusuales, como botellas, barras con un gancho o incluso lágrimas. Estos virus han sido estudiados en mayor detalle en los termófilos, en particular los órdenes Sulfolobales y Thermoproteales. La defensa contra estos virus pueden incluir la interferencia del ARN de secuencias de secuencias repetidas de ADN del genoma arqueobacterial que están relacionadas con los genes de los virus.Ciencias de la vida y medicina.Los virus son importantes para el estudio de la biología molecular y celular, pues son sistemas sencillos que se pueden utilizar para manipular e investigar el funcionamiento de las células. El estudio y el uso de los virus ha ofrecido información valiosa sobre aspectos de la biología celular. Por ejemplo, los virus han resultado útiles en el estudio de la genética y han contribuido a comprender los mecanismos básicos de la genética molecular, como la replicación del ADN, la transcripción, la maduración del ARN, la traducción, el transporte de proteínas y la inmunología.Los genetistas a menudo utilizan virus como vectores para introducir genes en células que están estudiando. Esto es útil para hacer que la célula produzca una sustancia ajena, o para estudiar el efecto de la introducción de un nuevo gen en el genoma. A este proceso se le denomina transducción. De manera similar, la viroterapia utiliza virus como vectores para tratar diversas enfermedades, pues pueden dirigirse específicamente a células y al ADN. Tiene un uso prometedor en el tratamiento del cáncer y en la terapia génica. Científicos del este de Europa han utilizado la terapia fágica como alternativa a los antibióticos desde hace un tiempo, y el interés por este enfoque está creciendo debido al alto nivel de resistencia a los antibióticos observado actualmente en algunas bacterias patógenas.Nanotecnología.Debido a su tamaño, forma y estructuras químicas bien definidas, los virus han sido utilizados como moldes para organizar materiales a nanoescala. Ejemplos recientes incluyen el trabajo hecho en el Naval Research Laboratory de Washington D. C., utilizando partículas del Cowpea mosaic virus (CPMV) para amplificar señales en sensores basados en chips de ADN. En este uso, las partículas víricas separan las tinciones fluorescentes utilizadas con el fin de evitar la formación de dímeros no fluorescentes que actúen como extintores. Otro ejemplo es el uso del CPMV como nanoplaca de pruebas para moléculas electrónicas.Armas.La capacidad de los virus de causar epidemias devastadoras en las sociedades humanas ha levantado la preocupación que se puedan convertir en armas biológicas. La preocupación aumentó después de que se consiguiera recrear el infame virus de la gripe española en un laboratorio. El virus de la viruela devastó numerosas sociedades a lo largo de la historia antes de ser erradicado. Actualmente sólo existe en varios laboratorios seguros en diversos lugares del mundo, pero los temores que pueda ser utilizado como arma no están totalmente infundados; la vacuna de la viruela no es segura —durante los años anteriores a la erradicación de la viruela, cayó más gente gravemente enferma como resultado de la vacunación que por la propia viruela — y la vacunación para la viruela ya no se practica. Por este motivo, gran parte de la población humana actual casi no tiene resistencia a la viruela.Virus de la Influenza.Virus del Herpes.Rotavirus (tamaño de la barra 100 nm). Fuente. Información que tal vez te pueda interesar.
¿Qué es un átomo?En química y física, átomo (del latín atomum, y éste del griego ἄτομον, sin partes; también, se deriva de "a" no, y "tomo" divisible; no divisible) es la unidad más pequeña de un elemento químico que mantiene su identidad o sus propiedades, y que no es posible dividir mediante procesos químicos.Su denso núcleo representan el 99.9% de la masa del átomo, y está compuesto de bariones llamados protones y neutrones, rodeados por una nube de electrones, que -en un átomo neutro- igualan el número de protones.El concepto de átomo como bloque básico e indivisible que compone la materia del universo fue postulado por la escuela atomista en la Antigua Grecia. Sin embargo, su existencia no quedó demostrada hasta el siglo XIX. Con el desarrollo de la física nuclear en el siglo XX se comprobó que el átomo puede subdividirse en partículas más pequeñas.Estructura atómica.A pesar de que "átomo" significa "indivisible", hoy día se sabe que el átomo está formado por partículas más pequeñas, las llamadas partículas subatómicas.El núcleo del átomo es su parte central. Tiene carga positiva, y en él se concentra casi toda la masa del mismo. Sin embargo, ocupa una fracción muy pequeña del volumen del átomo: su radio es unas diez mil veces más pequeño. El núcleo está formado por protones y neutrones.Alrededor del núcleo se encuentran los electrones, partículas de carga negativa y masa muy pequeña comparada con la de los protones y neutrones: un 0,05% aproximadamente. Los electrones se encuentran alrededor del núcleo, ligados por la fuerza electromagnética que éste ejerce sobre ellos, y ocupando la mayor parte del tamaño del átomo, en la llamada nube de electrones.Núcleo atómico.El núcleo del átomo se encuentra formado por nucleones, los cuales pueden ser de dos clases:Protones: una partícula con carga eléctrica positiva igual a una carga elemental, y una masa de 1,67262 × 10⁻²⁷ kg.Neutrones: partículas carentes de carga eléctrica, y con una masa un poco mayor que la del protón (1,67493 × 10⁻²⁷ kg).El núcleo más sencillo es el del hidrógeno, formado únicamente por un protón. El núcleo del siguiente elemento en la tabla periódica, el helio, se encuentra formado por dos protones y dos neutrones. La cantidad de protones contenidas en el núcleo del átomo se conoce como número atómico, el cual se representa por la letra Z y se escribe en la parte inferior izquierda del símbolo químico. Es el que distingue a un elemento químico de otro. Según lo descrito anteriormente, el número atómico del hidrógeno es 1 (1H), y el del helio, 2 (2He).La cantidad total de nucleones que contiene un átomo se conoce como número másico, representado por la letra A y escrito en la parte superior izquierda del símbolo químico. Para los ejemplos dados anteriormente, el número másico del hidrógeno es 1 (1H), y el del helio, 4 (4He).Existen también átomos que tienen el mismo número atómico, pero diferente número másico, los cuales se conocen como isótopos. Por ejemplo, existen tres isótopos naturales del hidrógeno, el protio (1H), el deuterio (2H) y el tritio (3H). Todos poseen las mismas propiedades químicas del hidrógeno, y pueden ser diferenciados únicamente por ciertas propiedades físicas.Otros términos menos utilizados relacionados con la estructura nuclear son los isótonos, que son átomos con el mismo número de neutrones. Los isóbaros son átomos que tienen el mismo número másico.Debido a que los protones tienen cargas positivas se deberían repeler entre sí, sin embargo, el núcleo del átomo mantiene su cohesión debido a la existencia de otra fuerza de mayor magnitud, aunque de menor alcance conocida como la interacción nuclear fuerte.Interacciones eléctricas entre protones y electrones.Antes del experimento de Rutherford la comunidad científica aceptaba el modelo atómico de Thomson, situación que varió después de la experiencia de Rutherford. Los modelos posteriores se basan en una estructura de los átomos con una masa central cargada positívamente rodeada de una nube de carga negativa.Este tipo de estructura del átomo llevó a Rutherford a proponer su modelo en que los electrones se moverían alrededor del núcleo en órbitas. Este modelo tiene una dificultad proveniente del hecho de que una partícula cargada acelerada, como sería necesario para mantenerse en órbita, radiaría radiación electromagnética, perdiendo energía. Las leyes de Newton, junto con la ecuaciones de Maxwell del electromagnetismo aplicadas al átomo de Rutherford llevan a que en un tiempo del orden de 10−10 s, toda la energía del átomo se habría radiado, con la consiguiente caída de los electrones sobre el núcleo.Nube de electrones.Alrededor del núcleo se encuentran los electrones que son partículas elementales de carga negativa igual a una carga elemental y con una masa de 9,10 × 10⁻³¹ kgLa cantidad de electrones de un átomo en su estado basal es igual a la cantidad de protones que contiene en el núcleo, es decir, al número atómico, por lo que un átomo en estas condiciones tiene una carga eléctrica neta igual a 0.A diferencia de los nucleones, un átomo puede perder o adquirir algunos de sus electrones sin modificar su identidad química, transformándose en un ion, una partícula con carga neta diferente de cero.El concepto de que los electrones se encuentran en órbitas satelitales alrededor del núcleo se ha abandonado en favor de la concepción de una nube de electrones deslocalizados o difusos en el espacio, el cual representa mejor el comportamiento de los electrones descrito por la mecánica cuántica únicamente como funciones de densidad de probabilidad de encontrar un electrón en una región finita de espacio alrededor del núcleo.Dimensiones atómicas.La mayor parte de la masa de un átomo se concentra en el núcleo, formado por los protones y los neutrones, ambos conocidos como nucleones, los cuales son 1836 y 1838 veces más pesados que el electrón respectivamente.El tamaño o volumen exacto de un átomo es difícil de calcular, ya que las nubes de electrones no cuentan con bordes definidos, pero su diámetro puede estimarse razonablemente en 1,0586 × 10⁻¹⁰ m, el doble del radio de Bohr para el átomo de hidrógeno. Si esto se compara con el tamaño de un protón, que es la única partícula que compone el núcleo del hidrógeno, que es aproximadamente 1 × 10–15 se ve que el núcleo de un átomo es cerca de 100.000 veces menor que el átomo mismo, y sin embargo, concentra prácticamente el 100% de su masa.Para efectos de comparación, si un átomo tuviese el tamaño de un estadio, el núcleo sería del tamaño de una canica colocada en el centro, y los electrones, como partículas de polvo agitadas por el viento alrededor de los asientos.Historia de la teoría atómica.El concepto de átomo existe desde la Antigua Grecia propuesto por los filósofos griegos Demócrito, Leucipo y Epicuro, sin embargo, no se generó el concepto por medio de la experimentación sino como una necesidad filosófica que explicara la realidad, ya que, como proponían estos pensadores, la materia no podía dividirse indefinidamente, por lo que debía existir una unidad o bloque indivisible e indestructible que al combinarse de diferentes formas creara todos los cuerpos macroscópicos que nos rodean. El siguiente avance significativo se realizó hasta en 1773 el químico francés Antoine-Laurent de Lavoisier postuló su enunciado: "La materia no se crea ni se destruye, simplemente se transforma."; demostrado más tarde por los experimentos del químico inglés John Dalton quien en 1804, luego de medir la masa de los reactivos y productos de una reacción, y concluyó que las sustancias están compuestas de átomos esféricos idénticos para cada elemento, pero diferentes de un elemento a otro.Luego en 1811 Amedeo Avogadro, físico italiano, postuló que a una temperatura, presión y volumen dados, un gas contiene siempre el mismo número de partículas, sean átomos o moléculas, independientemente de la naturaleza del gas, haciendo al mismo tiempo la hipótesis de que los gases son moléculas poliatómicas con lo que se comenzó a distinguir entre átomos y moléculas.El químico ruso Dmítri Ivánovich Mendeléyev creó en 1869 una clasificación de los elementos químicos en orden creciente de su masa atómica, remarcando que existía una periodicidad en las propiedades químicas. Este trabajo fue el precursor de la tabla periódica de los elementos como la conocemos actualmente.La visión moderna de su estructura interna tuvo que esperar hasta el experimento de Rutherford en 1911 y el modelo atómico de Bohr. Posteriores descubrimientos científicos, como la teoría cuántica, y avances tecnológicos, como el microscopio electrónico, han permitido conocer con mayor detalle las propiedades físicas y químicas de los átomos.Evolución del modelo atómico.La concepción del átomo que se ha tenido a lo largo de la historia ha variado de acuerdo a los descubrimientos realizados en el campo de la física y la química. A continuación se hará una exposición de los modelos atómicos propuestos por los científicos de diferentes épocas. Algunos de ellos son completamente obsoletos para explicar los fenómenos observados actualmente, pero se incluyen a manera de reseña histórica.Modelo de Dalton.Fue el primer modelo atómico con bases científicas, fue formulado en 1808 por John Dalton, quien imaginaba a los átomos como diminutas esferas. Este primer modelo atómico postulaba:La materia está formada por partículas muy pequeñas llamadas átomos, que son indivisibles y no se pueden destruir.Los átomos de un mismo elemento son iguales entre sí, tienen su propio peso y cualidades propias. Los átomos de los diferentes elementos tienen pesos diferentes.Los átomos permanecen sin división, aun cuando se combinen en las reacciones químicas.Los átomos, al combinarse para formar compuestos guardan relaciones simples.Los átomos de elementos diferentes se pueden combinar en proporciones distintas y formar más de un compuesto.Los compuestos químicos se forman al unirse átomos de dos o más elementos distintos.Sin embargo desapareció ante el modelo de Thomson ya que no explica los rayos catódicos, la radioactividad ni la presencia de los electrones (e-) o protones(p+).Modelo de Thomson.Luego del descubrimiento del electrón en 1897 por Joseph John Thomson, se determinó que la materia se componía de dos partes, una negativa y una positiva. La parte negativa estaba constituida por electrones, los cuales se encontraban según este modelo inmersos en una masa de carga positiva a manera de pasas en un pastel (de la analogía del inglés plum-pudding model) o uvas en gelatina. Posteriormente Jean Perrin propuso un modelo modificado a partir del de Thompson donde las "pasas" (electrones) se situaban en la parte exterior del "pastel" (la carga positiva).Modelo de Rutherford.Este modelo fue desarrollado por el físico Ernest Rutherford a partir de los resultados obtenidos en lo que hoy se conoce como el experimento de Rutherford en 1911. Representa un avance sobre el modelo de Thomson, ya que mantiene que el átomo se compone de una parte positiva y una negativa, sin embargo, a diferencia del anterior, postula que la parte positiva se concentra en un núcleo, el cual también contiene virtualmente toda la masa del átomo, mientras que los electrones se ubican en una corteza orbitando al núcleo en órbitas circulares o elípticas con un espacio vacío entre ellos. A pesar de ser un modelo obsoleto, es la percepción más común del átomo del público no científico.Rutherford predijo la existencia del neutrón en el año 1920, por esa razón en el modelo anterior (Thomson), no se habla de éste.Por desgracia, el modelo atómico de Rutherford presentaba varias incongruencias:Contradecía las leyes del electromagnetismo de James Clerk Maxwell, las cuales estaban muy comprobadas mediante datos experimentales. Según las leyes de Maxwell, una carga eléctrica en movimiento (en este caso el electrón) debería emitir energía constantemente en forma de radiación y llegaría un momento en que el electrón caería sobre el núcleo y la materia se destruiría. Todo ocurriría muy brevemente.No explicaba los espectros atómicos.Modelo de Bohr.Este modelo es estrictamente un modelo del átomo de hidrógeno tomando como punto de partida el modelo de Rutherford, Niels Bohr trata de incorporar los fenómenos de absorción y emisión de los gases, así como la nueva teoría de la cuantización de la energía desarrollada por Max Planck y el fenómeno del efecto fotoeléctrico observado por Albert Einstein.“El átomo es un pequeño sistema solar con un núcleo en el centro y electrones moviéndose alrededor del núcleo en órbitas bien definidas.” Las órbitas están cuantizadas (los e- pueden estar solo en ciertas órbitas)Cada órbita tiene una energía asociada. La más externa es la de mayor energía.Los electrones no radian energía (luz) mientras permanezcan en órbitas estables.Los electrones pueden saltar de una a otra órbita. Si lo hace desde una de menor energía a una de mayor energía absorbe un cuanto de energía (una cantidad) igual a la diferencia de energía asociada a cada órbita. Si pasa de una de mayor a una de menor, pierde energía en forma de radiación (luz).El mayor éxito de Bohr fue dar la explicación al espectro de emisión del hidrógeno. Pero solo la luz de este elemento. Proporciona una base para el carácter cuántico de la luz, el fotón es emitido cuando un electrón cae de una órbita a otra, siendo un pulso de energía radiada.Bohr no puede explicar la existencia de órbitas estables y para la condición de cuantización.Bohr encontró que el momento angular del electrón es h/2π por un método que no puede justificar.Modelo de Schrödinger.Después de que Louis-Victor de Broglie propuso la naturaleza ondulatoria de la materia en 1924, la cual fue generalizada por Erwin Schrödinger en 1926, se actualizó nuevamente el modelo del átomo.En el modelo de Schrödinger se abandona la concepción de los electrones como esferas diminutas con carga que giran en torno al núcleo, que es una extrapolación de la experiencia a nivel macroscópico hacia las diminutas dimensiones del átomo. En vez de esto, Schrödinger describe a los electrones por medio de una función de onda, el cuadrado de la cual representa la probabilidad de presencia en una región delimitada del espacio. Esta zona de probabilidad se conoce como orbital. La gráfica siguiente muestra los orbitales para los primeros niveles de energía disponibles en el átomo de hidrógeno.Modelo del átomo según Thomson.Modelo del átomo según Rutherford.Modelo del átomo según Bohr. Fuente. Información que tal vez te pueda interesar.

¿Qué es un binomio?El binomio es una expresión de solo dos términos. Cada uno de ellos está formado por su signo, su coeficiente, sus letras y sus números.Ejemplos:1) a + b2) 35 + x²3) ab.3c² + (-4c⁸.d)4) 9x⁷y³ - 5xy⁹El cuadrado de un binomio.El cuadrado de un binomio es igual al cuadrado del primer término, más el doble producto del primer término, por el segundo término, más el cuadrado del segundo término.Ejemplos:1) (a + b)² = a² + 2 ab + b²2) (8x + 3)² = (8x)² + 2.8x.3 + 3²3) (9x²y³ + 5xy²)² = (9x²y³)² + 2.9x²y³.5xy² + (5xy²)² = 81x⁴y⁶ + 90x³y⁵ + 25x²y⁴4) (9x²y³ - 5xy²)² = (9x²y³)² - 2.9x²y³.5xy² + (5xy²)² = 81x⁴y⁶ - 90x³y⁵ + 25x²y⁴El cubo de un binomio.El cubo de un binomio es igual al cubo del primer término, más el triple producto del primer término al cuadrado, por el segundo término, más el triple producto del primer término, por el segundo término al cuadrado, más el segundo término al cubo.Ejemplos:1) (a + b)³ = a³ + 3a²b + 3ab² + b³2) (5x + 3)³ = (5x)³ + 3(5x)²3 + 3(5x)3² + 3³3) (2x⁴ + 3y²)³ = (2x⁴)³ + 3(2x⁴)²3y² + 3(2x⁴)(3y²)² + (3y²)³ = 8x¹² + 36x⁸y² + 54x⁴y⁴ + 27y⁶4) (2x⁴ - 3y²)³ = (2x⁴)³ - 3(2x⁴)²3y² + 3(2x⁴)(3y²)² - (3y²)³ = 8x¹² - 36x⁸y² + 54x⁴y⁴ - 27y⁶Cubo de un binomio.Fuente: Conocimientos propios.Información que tal vez te interese.Ley de Ohm.