Estructura General de los insectos

Esquema de un coleóptero en vista dorsal para mostrar la morfología externa de un insecto. Referencias: A: Cabeza, B; Tórax, C: Abdomen; 1: antena, 2: mandíbula; 3: Labro; 4: Palpo maxilar; 5: Clípeo, 6: Frente; 7: Vértex; 8: Pronoto; 9: Escutelo; 10 élitro (= primer par de alas); 11: abdomen; 12: estigma; 13, 14 y 15: patas (pares anterior, medio y posterior).
Cabeza
La cabeza es la región anterior del cuerpo, en forma de cápsula, que contiene los ojos, antenas y piezas bucales. La forma de la cabeza varía considerablemente entre los insectos para dar espacio a los órganos sensoriales y a las piezas bucales. La parte externa endurecida o esclerosada de la cabeza se llama cráneo.
La cabeza de los insectos está subdividida por suturas en un número de escleritos más o menos diferenciados que varían entre los diferentes grupos. Típicamente hay una sutura en forma de "Y" invertida, extendiéndose a lo largo de la parte dorsal y anterior de la cabeza, bifurcándose por encima del ocelo para formar dos suturas divergentes, las cuales se extienden hacia abajo en los lados anteriores de la cabeza. La parte dorsal de esta sutura (la base de la Y) es llamada sutura coronal y las dos ramas anteriores suturas frontales. Por otra parte, la cabeza de los insectos está constituida de una región preoral y de una región postoral. La región preoral contiene los ojos compuestos, ocelos, antenas y áreas faciales, incluido el labio superior, y la parte postoral contiene las mandíbulas, las maxilas y los labios.
Internamente, el exoesqueleto de la cápsula cefálica de los insectos se invagina para formar las ramas del tentorio que sirven como sitios de inserción muscular

Ojos compuestos de un odonato.
La mayoría de los insectos tienen un par de ojos compuestos relativamente grandes, localizados dorso-lateralmente en la cabeza. La superficie de cada ojo compuesto está dividida en un cierto número de áreas circulares o hexagonales llamadas facetas u omatidios; cada faceta es una lente de una única unidad visual. En adición a los ojos compuestos, la mayoría de los insectos posee tres ojos simples u ocelos localizados en la parte superior de la cabeza, entre los ojos compuestos.
Tórax
El tórax es la región media del cuerpo y contiene las patas y las alas (en algunos insectos adultos no hay alas y en muchos insectos inmaduros y en algunos adultos no hay patas). El tórax está compuesto de tres segmentos, protórax, mesotórax, y metatórax, cada segmento torácico tiene típicamente un par de patas y meso y metatórax un par de las alas cada uno (cuando están presentes); cuando hay un solo par de alas, están situadas en el mesotórax, excepto en los estrepsípteros que solo conservan las alas metatorácicas; el protórax nunca tiene alas.
El tórax está unido a la cabeza por una región del cuello, membranosa, el cerviz. Hay generalmente uno o dos escleritos pequeños en cada lado del cuello, los cuales ligan la cabeza con el protórax.
Cada segmento torácico está compuesto de cuatro grupos de escleritos. El noto dorsalmente, las pleuras lateralmente y el esternón ventralmente. Cualquier esclerito torácico puede ser localizado en un segmento particular por el uso de prefijos apropiados: pro-, meso- y meta-. Por ejemplo, el noto del protórax es llamado pronoto.
Los notos del mesotórax y metatórax están frecuentemente subdivididos por suturas en dos o más escleritos cada uno. La pleura es un segmento portador de alas, forma un proceso alar-pleural que sirve como sostén para el movimiento del ala.
En cada lado del tórax hay dos aberturas en forma de hendiduras, una entre el protórax y el mesotórax y la otra entre el meso y el metatórax. Estas son los estigmas, o sea las aberturas externas del sistema traqueal.
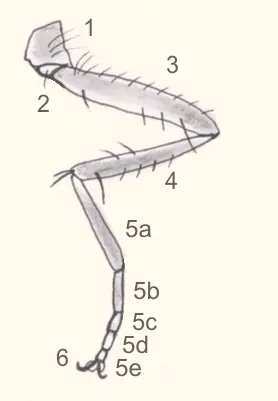
Pata de un insecto
1: Coxa; 2: Trocánter; 3: Fémur; 4: Tibia; 5: Tarso (5a-e: tarsómeros); 6: Uña.
Consisten típicamente en los segmentos siguientes:
• Coxa, segmento basal
• Trocánter, segmento pequeño, (raramente dos segmentos), siguiendo a la coxa
• Fémur, primer segmento largo de la pata
• Tibia, es el segmento largo de la pata
• Tarsos, una serie de pequeños segmentos (tarsómeros) después de la tibia. El número de segmentos tarsales en los insectos diferentes varía de uno a cinco. El último segmento tarsal generalmente contiene un par de garras o uñas y frecuentemente uno o más estructuras en formas de almohada, entre o en la base de las uñas. Una almohada o lóbulo entre las uñas es generalmente llamada arolium y almohadas localizadas en la base de las uñas son llamadas pulvillos.
Alas

Anatomía del movimiento alar; a: alas; b: articulaciones de las alas; c: músculos transversales; d: músculos longitudinales.
Las alas de los insectos son evaginaciones de la pared del cuerpo localizadas dorso-lateralmente entre los notos y las pleuras. La base del ala es membranosa, esto hace posible el movimiento del ala.
Las alas de los insectos varían en número, tamaño, forma, textura, nerviación, y en la posición en que son mantenidas en reposo. La mayoría de los insectos adultos tienen dos pares de alas, situadas en el meso y metatórax; algunos, como los dípteros, tienen un solo par (siempre situado en el mesotórax salvo en estrepsípteros que las poseen en el metatórax) y algunos no poseen alas (por ejemplo, formas ápteras de los pulgones, hormigas obreras, pulgas, etc.).
En la mayoría de los insectos las alas son membranosas y pueden contener pequeños pelos o escamas; en algunos insectos las alas anteriores son engrosadas, coriáceas o duras y en forma de vaina, esa estructura es conocida como élitro (en los coleópteros). Las chinches tienen el primer par de alas engrosado en su base; a este tipo de alas se les llama hemiélitros. Las langostas, grillos, cucarachas, entre otros insectos primitivos tienen el primer par de alas angosto y con la consistencia de un pergamino; éstas reciben el nombre de tegminas. Las alas membranosas de los insectos son usadas para volar, aquéllas endurecidas como es el caso de los élitros, hemiélitros, tegminas, cuando plegadas sirven de protección al segundo par de alas que es delicado por ser membranoso y también al abdomen. Las alas son también importantes para producir ciertos sonidos, para dispersar olores y, por su diseño, tienen importancia en el camuflaje y el mimetismo.
La mayoría de los insectos son capaces de doblar las alas sobre el abdomen cuando están en reposo, pero los grupos más primitivos, como libélulas y efímeras, no pueden hacerlo y mantienen las alas extendidas para afuera, o reunidas encima del cuerpo.
Algunos insectos como grillos y langostas machos, son capaces de producir un sonido característico con las alas friccionando las dos alas anteriores entre sí, o las alas anteriores con las patas posteriores.
Muchos insectos como las moscas y abejas, mueven las alas tan rápidamente que se produce un zumbido. El zumbido, por su frecuencia sonora, es un caracter específico y en insectos como los mosquitos o zancudos hembras, es un elemento usado por las hembras para atraer a los machos que vuelan en un enjambre.
Los insectos son los únicos invertebrados capaces de volar. En el Carbonífero, algunas Meganeura (un grupo relacionado con las libélulas actuales) tenían una envergadura de 75 cm.; la aparición de insectos gigantes parece tener una relación directa con el contenido de oxígeno de la atmósfera, que en aquella época era del 35%, comparado con el 21% actual; el sistema traqueal de los insectos limita su tamaño, de modo que elevadas concentraciones de oxígeno permitieron tamaños mayores.
 Los mayores insectos voladores actuales, como algunas mariposas nocturnas (Attacus atlas, Thysania agrippina) son mucho menores.
Además del vuelo activo, muchos pequeños insectos son también dispersados por el viento. Éste es el caso de los pulgones que a menudo son transportados largas distancias por las corrientes de aire.
Abdomen
El abdomen de los insectos posee típicamente 11 segmentos, pero el último está muy reducido, de modo que el número de segmentos raramente parece ser más de 10. Los segmentos genitales pueden contener estructuras asociadas con las aberturas externas de los conductos genitales; en el macho estas estructuras se relacionan con la cópula y la transferencia de esperma a la hembra; y en las hembras están relacionados con la oviposición.
En el extremo del abdomen puede haber apéndices, los cuales surgen del segmento 10 y son los cercos, que son de valor taxonómico.
Exoesqueleto
El exoesqueleto o ectoesqueleto es el esqueleto externo que recubre todo el cuerpo de los insectos y demás artrópodos y que también se conoce como integumento. En insectos está formado por una sucesión de capas; de adentro hacia afuera éstas son: la membrana basal, la epidermis o hipodermis y la cutícula; la única capa celular es la epidermis; el resto no posee células y está compuesto por algunas de las siguientes sustancias: quitina, artropodina, esclerotina, cera y melanina. El componente rígido, la esclerotina, cumple varios papeles funcionales que incluyen la protección mecánica del insecto y el apoyo de los músculos esqueléticos, a través del llamado endoesqueleto; en los insectos terrestres, el exoesqueleto también actúa como una barrera para evitar la desecación o pérdida del agua interna. El exoesqueleto apareció por primera vez en el registro fósil hace unos 550 millones de años y su evolución ha sido crítica para la radiación adaptativa y la conquista de casi todos los nichos ecológicos del planeta que los artrópodos han venido realizando desde el Cámbrico.
ESTRUCTURA INTERNA DETALLADA
Aparato digestivo

Anatomía interna del insecto. 1: cerebro; 2: ganglio; 3: cuerpo allatum; 4: cuerpo faríngeo; 5: aorta; 6: ganglio stomacal; 7: buche; 8: ventrículo; 9: válvula cardíaca; 10: mesenterón; 11: hemocele; 12: ventrículo; 13: corazón; 14: ostiolo; 15: recto; 16: ano; 17: vagina; 18: ganglio frontal; 19: anillo periesofágico; 20: epifaringe; 21: faringe; 22: gnatocerebro; 23: esófago; 24: ganglio ventral; 25: válvula pilórica; 26: tubos de Malpighi; 27: proctodeo; 28: ovariola; 29: ovario; 30: espermateca
El aparato digestivo o canal alimenticio de los insectos es un tubo, generalmente algo enrollado que se extiende desde la boca al ano. Se divide en tres regiones: el estomodeo, el mesenterón y el proctodeo. Cada una de estas tres regiones puede estar subdividida en subregiones. Separando estas regiones hay válvulas y esfínteres que regulan el paso del alimento de una a otra.
Glándulas labiales
La mayoría de los insectos posee un par de glándulas debajo de la parte anterior del canal alimenticio. Los conductos de estas glándulas se extienden hacia delante y se unen en un ducto común que se abre cerca de la base del labio o de la hipofaringe. Generalmente se las conoce con el nombre de glándulas salivales pero no siempre segregan saliva. Es más apropiado llamarlas glándulas labiales. Generalmente hay un ensanchamiento del ducto de cada glándula que sirve de reservorio de la secreción. Las glándulas labiales de las larvas de Lepidoptera e Hymenoptera segregan seda que es utilizada en la confección de capullos o de refugios. En otros insectos las glándulas labiales segregan veneno.
Estomodeo
La parte anterior del tubo digestivo generalmente se diferencia en faringe (dentro de la misma boca), esófago (un tubo delgado que se extiende a continuación de la faringe), buche (un ensanchamiento en la parte final del esófago) y los proventrículos. A continuación se encuentra la válvula estomodeal que regula el paso de alimentos y de jugos digestivos del estomodeo al mesenterón.
El interior del estomodeo está cubierto de una membrana relativamente gruesa, hecha de cutícula, que a veces tiene pliegues y proyecciones o bien cerdas o espículas.
La parte anterior del estomodeo posee músculos dilatadores. Estos músculos están más desarrollados en la región faríngea de insectos chupadores en los que la faringe funciona como una bomba.
Mesenterón
El intestino medio o mesenterón es un saco alargado de diámetro generalmente uniforme. A veces se subdivide en dos o más partes. Generalmente presenta divertículos (los ciegos gástricos) que suelen encontrarse cerca de la parte anterior del mesenterón.
El intestino medio no tiene cutícula, ni tampoco segrega mucus para lubricar la comida y proteger las células epiteliales. En cambio, las células epiteliales segregan una fina membrana de quitina y proteína, llamada membrana peritrófica la cual impide que los alimentos entren en contacto directo con las células epiteliales. Esta membrana es permeable, permitiendo el paso de enzimas digestivas en una dirección y de los productos de la digestión en la dirección opuesta. Se desprende, envuelve a una porción de los alimentos y es eliminada con los productos digestivos.
El epitelio del mesenterón es más grueso que el de otras porciones del tubo digestivo y tiene irregularidades y proyecciones en forma de dedos. El mesenterón está rodeado de una capa muscular más fina que la del estomodeo.
Proctodeo
La parte final del intestino se extiende desde la válvula pilórica hasta el ano. La parte posterior está sostenida por músculos que se insertan en las paredes abdominales. Se pueden diferenciar por lo menos dos partes en el proctodeo: el intestino anterior y el recto. El intestino anterior puede ser un simple tubo o estar subdividido en íleo y colon. Los tubos de Malpighi que tienen función excretoria desembocan en la parte anterior del proctodeo.
El proctodeo está cubierto de cutícula al igual que el estomodeo, pero ésta es más fina y es permeable al agua.
El aparato digestivo de los insectos presenta gran variación dentro de este plan general. Los adultos de ciertas especies de insectos viven muy poco tiempo y no se alimentan; por lo tanto carecen de aparato digestivo, por ejemplo las efímeras y ciertas mariposas nocturnas o polillas, tales como los (satúrnidos) y las polillas de la ropa (miembros de la familia Tineidae). Las larvas de muchas especies tienen una alimentación totalmente diferente a la de los adultos. El aparato digestivo está adaptado para este fin y puede presentar profundas diferencias con el del adulto.

Cámara de filtración de Cercopidae.. 1: estomodeo; 2: válvula cardíaca; 3: parte anterior del mesenterón; 4: Cámara de filtración; 5: membrana peritoneal; 6: parte media del mesenterón; 7: tubos de Malpighi; 8: parte posterior del mesenterón; 9: proctodeo; 10: recto.Cámara de filtración
Muchos hemípteros tienen una modificación del canal alimenticio conocida como la cámara de filtración que sirve para extraer agua de los alimentos que llegan al estomodeo. Consiste de dos partes sostenidas por tejido conectivo: la parte anterior del estomodeo y la parte anterior del proctodeo. Sirve para eliminar el exceso de agua que entra con los alimentos en insectos chupadores.
Sistema respiratorio de los insectos.
El sistema traqueal de los insectos consta de los siguientes elementos:
• Estigmas o espiráculos. Las tráqueas conectan con el exterior a través de poros redondeados llamados estigmas o espiráculos que se abren al exterior directamente o poseen una cámara (atrio o cavidad subestigmética) con estructuras como pelos o espinas que minimizan la pérdida de agua e impiden la entrada de polvo y parásitos; para tal fin, también tienen diferentes sistemas de cierre. La distribución de los espiráculos puede variar mucho entre los diferentes órdenes de insectos, pero en general cada segmento del cuerpo puede tener un par
• Tráqueas. Son tubos vacíos por los que circulan los gases respiratorios; además de estar revestidas de cutícula presentan anillos en espiral (tenidios) que las refuerzan e impiden que se colapsen. Las tráqueas son permeables a los gases en todo su recorrido. En relación con las tráqueas pueden existir sacos aéreos que son cámaras muy dilatables que almacenan aire y facilitan el vuelo
• Traqueolas. Las tráqueas se ramifican y se hacen más estrechas para originar las traqueolas que transportan los gases metabólicos desde y hacia los tejidos. Las traqueolas, penetran en las células y actúan como puntos de intercambio de agua, oxígeno y dióxido de carbono.
En algunos insectos acuáticos las tráqueas intercambia gases directamente a través del tegumento gracias a la existencia de estructuras branquiales recubiertas por cutícula muy fina, denominadas traqueobranquias.
Aparato circulatorio
Como en los demás artrópodos, la circulación es abierta y lagunar, y en los insectos está simplificada. El líquido circulatorio es la hemolinfa que llena la cavidad general del cuerpo que por esta razón se denomina hemocele que está subdividida en tres senos (pericárdico, perivisceral y perineural). El corazón se sitúa en posición dorsal en el abdomen dentro del seno pericárdico; tiene una válvula en cada metámero que delimita varios compartimentos o ventrículos, cada uno de ellos con un par de orificios u ostiolos por los que penetra la hemolinfa cuando el corazón se dilata (diástole). El corazón se prolonga hacia adelante en la arteria aorta por la que sale la hemolinfa cuando el corazón se contrae (sístole); suele ramificarse para distribuir la hemolinfa a la región cefálica. Pueden existir órganos pulsátiles accesorios en diferentes partes del cuerpo, que actúan como corazones accesorios que aseguran la llegada de la hemolinfa a los puntos más distales (antenas, patas).
Aparato excretor
Tubos de Malpighi

El aparato excretor de los insectos está constituido por los tubos de Malpighi. Son tubos ciegos que flotan en el hemocele, de donde captan los productos residuales y desembocan en la parte final del tubo digestivo donde son evacuados y eliminados con las heces. Son capaces de reabsorber agua y electrolitos, con lo que juegan un importante papel en el equilibrio hídrico y osmótico. Su número oscila entre cuatro a más de cien. Los insectos son uricotélicos, es decir, excretan principalmente ácido úrico. Excepcionalmente, los tubos de Malpighi se modifican en glándulas productoras de seda u órganos productores de luz.
Algunos insectos poseen órganos excretores adicionales e independientes del tubo digestivo, como las glándulas labiales o maxilares, y los riñones de acumulación (cuerpos pericárdicos, nefrocitos dispersos por el hemocele, oenocitos epidérmicos y células del urato).
Tubos de Malpighi
Diagrama estilizado del aparato digestivo de un insecto mostrando los tubos de Malpighi de (Orthoptera). Intestino medio, intestino posterior, recto, tubos de Malpighi.
Los tubos o túbulos de Malpighi o de Malpigio son un sistema excretor y osmoregulador presente en insectos, miriápodos, arácnidos y tardígrados.
Estructura
El sistema excretorio de estos artrópodos consiste de una serie de tubos angostos que se desarrollan por evaginación de la parte anterior del último segmento intestinal o proctodeo. Cada tubo consiste de una sola capa de células con un extremo ciego y otro extremo que desemboca en el aparato digestivo.
El número total de túbulos varía según la especie, en general en múltiples de dos; puede haber más de un centenar. Son largos y se suelen encontrar enrollados. Se encuentran bañados por hemolinfa y en proximidad a tejidos adiposos. Las células de sus paredes son ricas en la proteína actina que sirve de soporte y en microfilamentos para la propulsión de sustancias. Los tubos de Malpighi de la mayoría de los insectos poseen musculatura que sirve para mezclar el contenido de los túbulos y para aumentar el contacto de los tubos con la hemolinfa. Los órdenes de insectos Thysanura, Dermaptera y Thysanoptera no poseen tales músculos. Collembola (un hexápodo relacionado a los insectos) y Aphididae (del órden Hemiptera) carecen totalmente de tubos de Malpighi
Aun no se sabe si los sistemas de arácnidos, insectos y miriápodos son del mismo origen evolutivo, homólogos, o no.
Otros grupos de invertebrados tienen sistemas excretores de otro tipo, llamados nefridios.
Forma de acción
Son eficientes en desechar productos nitrogenados innecesarios con una mínima pérdida de agua, motivo por el cual muchos arácnidos e insectos pueden colonizar entornos muy áridos. La pre-orina se forma por medio del transporte de electrolitos y desechos nitrogenados a través de las paredes permeables de los túbulos. Se cree que desechos como urea y aminoácidos pasan por difusión mientras que los iones como sodio y potasio requieren un mecanismo activo de bombeo. El agua sigue a estos iones. La pre-orina junto con los productos de la digestión se mezclan en el intestino posterior. En este punto, el ácido úrico cristaliza (precipita) mientra que los iones de sodio y potasio junto con el agua son reabsorbidos por ósmosis activa en el recto. El ácido úrico que queda es eliminado con las heces. Éste es el modo de acción más simple en insectos como los ortópteros.
Sistema nervioso de los insectos
Consiste del sistema nervioso central y del sistema simpático o vegetativo.
•
Sistema nervioso central
El sistema nervioso central consiste de un cerebro colocado en la cabeza encima del esófago, un ganglio subesofágico conectado al cerebro por dos comisuras que se extienden a ambos lados del esófago y de una cadena ventral de nervios que se extiende desde el ganglio subesofágico hasta el final del cuerpo.
El cerebro consiste de tres pares de lóbulos: el protocerebro, el deutocerebro y el tritocerebro. El protocerebro inerva a los ojos compuestos y los ocelos; el deutocerebro a las antenas y el tritocerebro al labro y estomodeo. El Sistema Circumesofágico conecta al tritocerebro con el ganglio subesofágico.
El ganglio subesofágico es el resultado de la fusión de tres pares de ganglios. Inerva a las mandíbulas, maxilas, labio y ducto salival.
El cordón nervioso ventral generalmente es un cordón doble con un par de ganglios en cada segmento. Sin embargo en muchos casos algunos de estos ganglios están fusionados y el número total de ganglios es menor al número total de segmentos.
La proporción entre el tamaño del cerebro y el del cuerpo varía según las especies siendo más grande en las especies de comportamiento complejo.
El sistema nervioso de los insectos es mucho más descentralizado que el de vertebrados. Un insecto puede seguir viviendo varios días y aun semanas después de ser decapitado mientras no sufra deshidratación.
Sistema nervioso simpático o vegetativo
Los órganos internos de los insectos están inervados por el sistema vegetativo, el cual está conectado con el sistema nervioso central y con el endocrino. Está constituido por el sistema estomogástrico o anterior, siempre presente y por el sistema simpático terminal que puede estar ausente en muchos casos.
El sistema estomogástrico es impar, se encuentra en la parte anterior del cuerpo. Inerva al aparato digestivo, regulando los procesos de digestión. También regula los latidos del corazón.
El sistema simpático terminal cuando existe inerva al proctodeo o parte final del aparato digestivo y a los órganos genitales.
Órganos de los sentidos
Sensilia de insectos.
La unidad sensorial básica es la sensilia. En los insectos la mayoría de los órganos de los sentidos están colocados en la pared del cuerpo. Algunos son microscópicos. Reciben un solo tipo de estímulo. Hay órganos que perciben estímulos mecánicos, químicos, visuales, auditorios y de otros tipos.
Sentidos químicos
Son los órganos del gusto y del olfato. La diferencia entre éstos es que el gusto se percibe en contacto y los olores a distancia.
Sentidos mecánicos
El tipo más simple de receptor táctil es un pelo o cerda provisto de una célula nerviosa, una sensilia pilosa. Hay dos tipos más complejos de sensilia.
Órganos auditivos
Los insectos perciben ondas sonoras o vibraciones por medio de dos tipos de órganos: sensilias pilosas y órganos timpánicos. Las vibraciones del sustrato son percibidas por otro tipo de órganos, descripto en los sentidos mecánicos.
Órganos de la visión
Ojo compuesto
Ojo compuesto de una libélula.
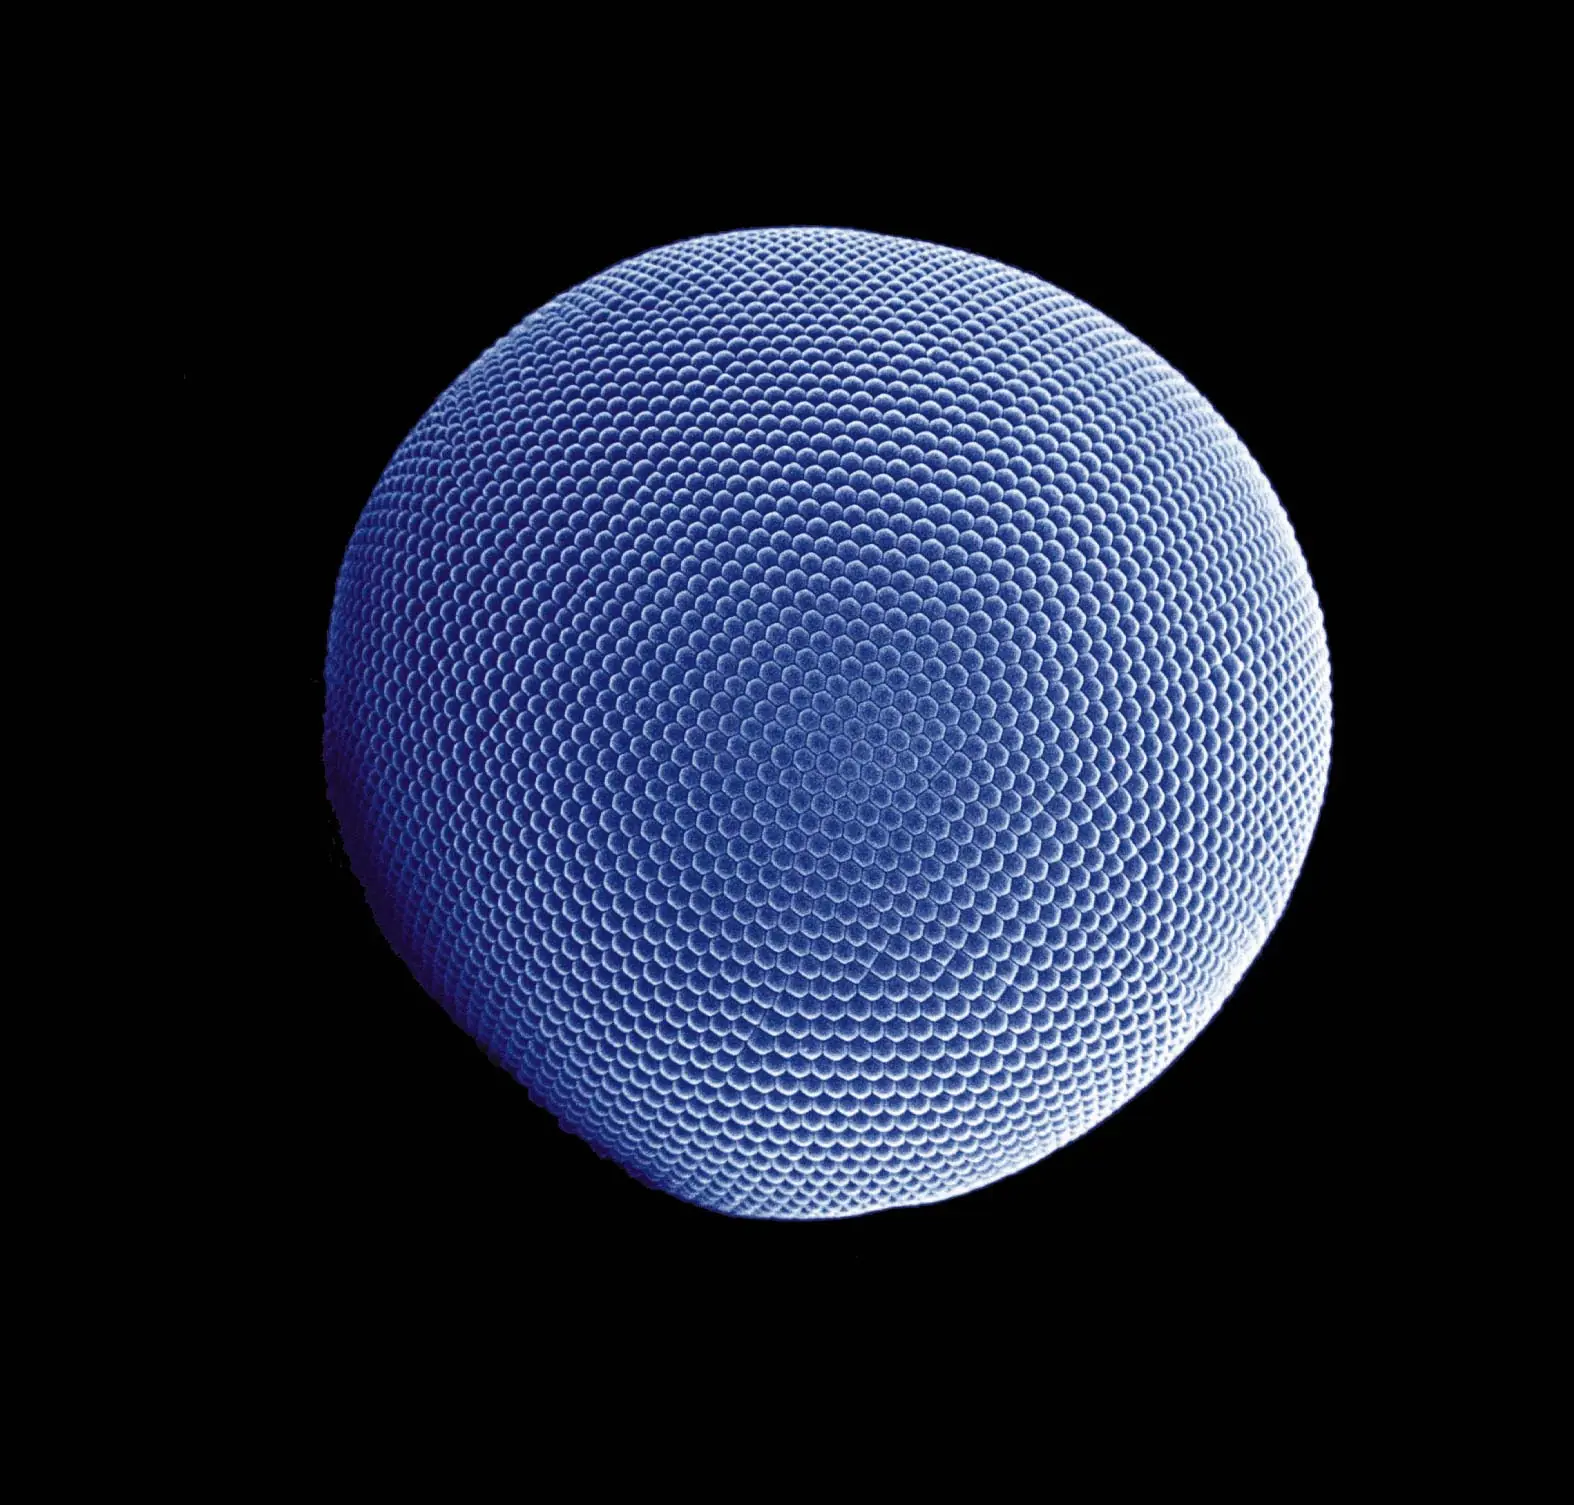
Ojo compuesto de krill de la Antártida
Un ojo compuesto es un órgano visual que se encuentra en ciertos artrópodos como insectos y crustáceos. Consiste en la agrupación de entre 12 y varios miles (6.300 en Apis mellifera) de unidades receptivas llamadas omatidios. Los omatidios son unidades sensoriales formadas por células capaces de distinguir entre la presencia y la falta de luz y en algunos casos, capaces de diferenciar los colores. La imagen que percibe un artrópodo es el conjunto de señales de los múltiples omatidios orientados en direcciones diferentes. Contrariamente a otros tipos de ojos, no tiene una lente central, lo cual implica una baja resolución de imagen. Asimismo, el ojo compuesto es capaz de detectar movimientos rápidos, ve un amplio rango de ángulo sólido y en algunos casos, percibe la polarización de la luz.
Cada omatidio consiste en una lente y un rabdómero, que consiste en un grupo de células receptoras visuales puestas en paralelo o ligeramente giradas.
Hay dos tipos básicos de ojos compuestos:
• El ojo de aposición que se puede dividir en dos grupos. El típico ojo de aposición tiene una lente que enfoca la luz proveniente de una dirección sobre el rabdómero, mientras que la luz proveniente de otras direcciones se absorbe en las paredes oscuras del ommatidio. El otro tipo de ojo de aposición se encuentra en el Strepsiptera, en el cual cada lente forma una imagen, y las imágenes se combinan en el cerebro. Este ojo se llama ojo de superposición neuronal u ojo esquizocroal compuesto.
• El segundo tipo se llama ojo de superposición. Se divide en tres tipos: superposición refractante, superposición reflectante y superposición parabólica. El ojo de superposición refractante tiene una obertura entre la lente y el rabdómero y no tiene pared. Cada lente refleja la luz en un ángulo igual al ángulo que la recibe. El resultado es la formación de la imagen en la mitad del radio del ojo, donde hay situadas las testas de los rabdómero. Este tipo de ojo se encuentra normalmente en insectos nocturnos. En los ojos compuestos de superposición parabólica, que se encuentran en artrópodos como las efímeras, cada faceta de la superficie del ojo contiene una superficie parabólica que recibe la luz de un reflector y la enfoca sobre una matriz de sensores. Los crustáceos de cuerpo largo como gambas, langostinos y langostas son los únicos que tienen ojos de superposición reflectante, que también tienen una obertura pero que en lugar de lentes utilizan diedros de espejos.
Hay algunas excepciones de los casos anteriores. Algunos insectos tienen lo que se denomina un ojo compuesto de lente simple, que es un caso intermedio entre el ojo compuesto de superposición y el ojo de lente simple que se encuentra en los animales de ojos simples.
El cuerpo del Ophiocoma wendtii, un tipo de ofiuroideo, está cubierta de omatidios, convirtiendo toda su piel en un ojo compuesto
Reproducción
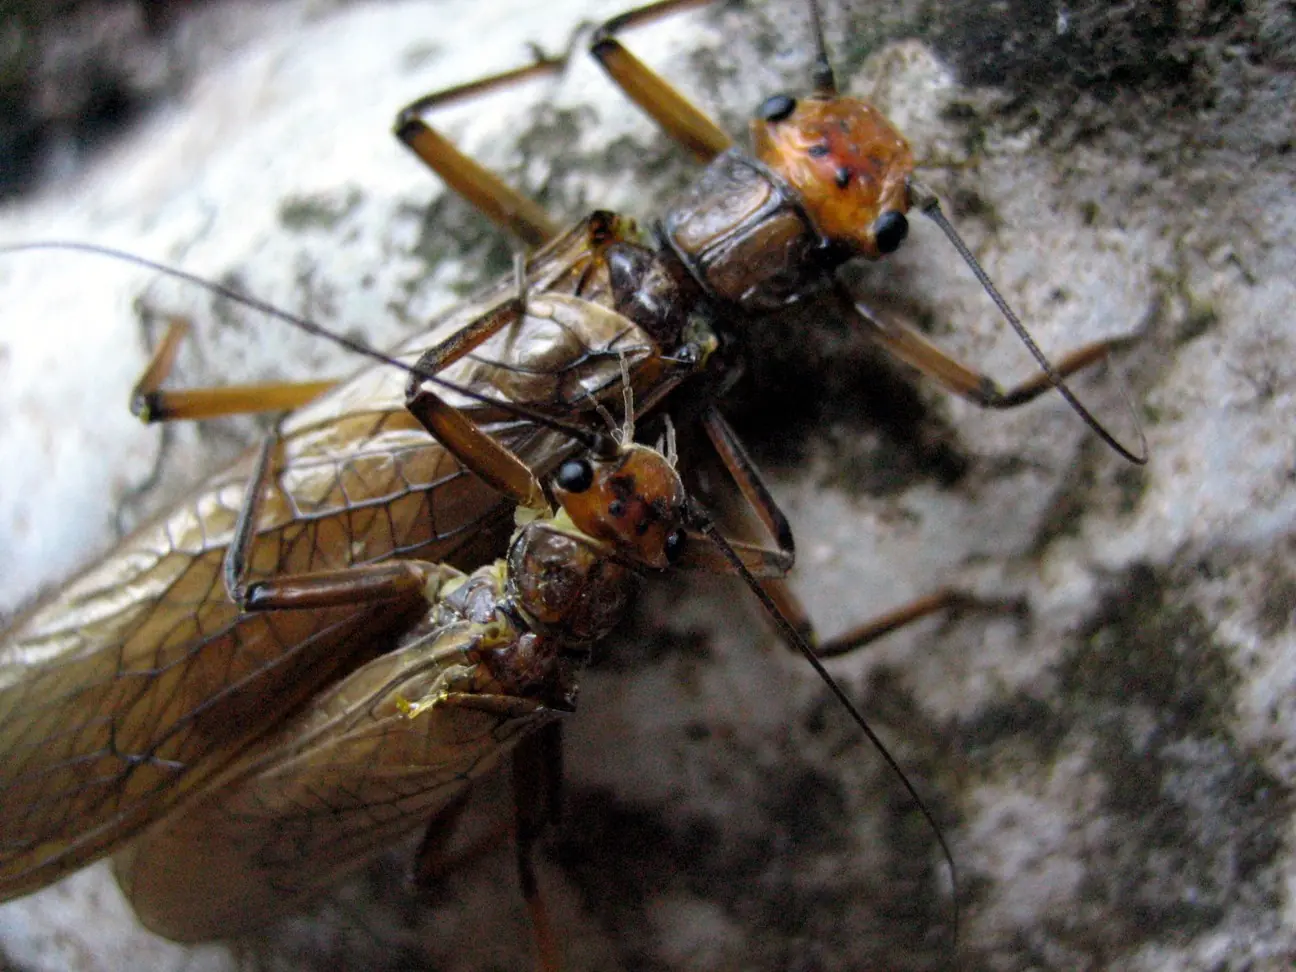
Plecópteros apareándose.
Ooteca de Mantodea.
La mayoría de las especies de insectos tienen sexos separados, morfológicamente diferenciados entre sí, y deben aparearse para reproducirse. No obstante, además de este tipo de reproducción sexual, existen especies que pueden reproducirse sin aparearse e, incluso, éste puede ser el proceso típico de reproducción en varias de ellas. Estas especies se denominan partenogenéticas y su tipo de reproducción es eminentemente asexual. Este mecanismo de reproducción está bastante distribuida en la mayoría de los órdenes de apterigotos. Aunque todavía mucho menos frecuente, existen especies de insectos que son hermafroditas, es decir, llevan los dos sexos funcionales en el mismo individuo (como por ejemplo Icerya purchasi y Perla marginata).
Un buen ejemplo de especie partenogenética es el insecto palo (Dixppus morosus). Los machos en esta especie son sumamente escasos y las hembras comienzan a poner huevos no fertilizados en cuanto maduran. Estos huevos se desarrollan y abren con normalidad, dando origen a nuevas hembras. De este modo una generación de hembras, genéticamente idéntica a la anterior, sucede a otra ininterrumpidamente. Este tipo de partenogénesis, en la cual los óvulos se producen sin reducción del número cromosómico (sin meiosis) y las hembras dan origen a más hembras, se denomina partenogénesis telitóquica y es el mecanismo usual de reproducción entre los áfidos.
De un modo algo diferente, una abeja reina (Apis mellifera) puede poner huevos fertilizados (diploides) de los que surgen hembras, y huevos sin fecundar (haploides) de los que surgirán machos (los zánganos). En este caso, en el que la partenogénesis se produce a partir de óvulos que han surgido por meiosis por lo que hay reducción del número cromosómico, la partenogénesis se denomina arrenotóquica. Este sistema de determinación de sexo en el que las hembras son diploides y los machos son haploides se denomina haplodiploidía. El mismo combina la reproducción sexual y asexual de un modo adaptativo y se halla bastante distribuido entre los himenópteros.
La mayoría de las especies de insectos ponen huevos (son ovíparas). No obstante, hay casos en los que las hembras paren a sus crías, como por ejemplo en los áfidos. Los ejemplos de viviparidad, si bien escasos, son también muy diversos. En algunos casos el huevo se abre inmediatamente antes de ser puesto; en otros, como en la mosca tse-tse, se desarrolla dentro del cuerpo de la madre y la cría no nace sino hasta el estado de pupa. En algunos insectos parásitos (Strepsiptera, himenópteros parásitos) un solo huevo puesto del modo acostumbrado se divide repetidamente hasta alcanzar una progenie de hasta 2.000 individuos, de igual genotipo y sexo, fenómeno conocido como poliembrionía. Las larvas poliembriónicas son a menudo caníbales, por lo que se logran establecer pocos adultos.
Un método muy singular de reproducción es el proceso conocido como paidogénesis. Las larvas de Miastor metraloas, por ejemplo, pueden reproducirse por sí mismas a partir de huevos no fertilizados existentes en el interior de una gran larva viva. Las nuevas larvas crecen como parásitos en el cuerpo de su semejante y cuando se hallan maduras para emerger, la larva original muere. Las crías repiten el proceso, de modo que el número de larvas continúa incrementando, hasta que se transforman en insectos adultos
Los huevos pueden ser colocados solitarios o en grupos, a veces dentro de una estructura protectora llamada ooteca. La forma y el tamaño de los huevos son tan variados como los insectos que los ponen. Los huevos de las mariposas, por ejemplo, suelen presentar intrincados dibujos, con una superficie cubierta de numerosos realces y nerviaciones. Muchos insectos ponen sus huevos en las raíces, o en los brotes y tejidos tiernos de las plantas, o dentro de los granos de los cereales e incluso, dentro de otros animales. El lugar donde los insectos deponen los huevos, si bien variado, no es de ningún modo aleatorio. El objetivo de escoger cuidadosamente el lugar de la puesta es siempre el mismo: poner los huevos en el lugar dónde las larvas recién nacidas estén rodeadas de alimento.
En la mayoría de los insectos la vida reproductiva de una hembra es muy breve y todos los huevos producidos son puestos en rápida sucesión en un lapso muy corto. No obstante, en algunas otras especies, especialmente en los denominados insectos sociales como abejas, hormigas y termitas, la vida reproductora de una hembra dura hasta tres años. Se calcula que la reina de las termitas, por ejemplo, pone un huevo cada dos segundos, día y noche, durante un período de 10 años. Como en la comunidad es el único adulto procreador, la población del termitero decrecería rápidamente sin ese ritmo de fertilidad.
SINTEMA ENDOCRINO
El sistema endocrino es muy importante en los insectos (regulan las mudas y las metamorfosis) y puede decirse que tiene los siguientes componentes: grupos de células neurosecretoras, axones que llevan esa secreción a los lugares de dispersión y glándulas endocrinas, de origen epidérmico, que segregan y liberan directamente hormonas.